
La epigenética, el estudio de los cambios hereditarios en la expresión génica que no implican alteraciones en la secuencia de ADN, ha emergido como un campo transformador en la biología y la medicina, revelando cómo se modula la expresión génica en respuesta a señales internas y externas. La regulación epigenética es fundamental para la biología del desarrollo, la patogenia de las enfermedades, las interacciones gen-ambiente, la herencia transgeneracional y el desarrollo terapéutico. Al dilucidar cómo se regulan dinámicamente los genes más allá del genoma estático, la epigenética conecta la genética con las influencias ambientales, ofreciendo perspectivas sobre los mecanismos de las enfermedades y estrategias terapéuticas innovadoras.
Analizamos la CAS Content CollectionTM, el mayor repositorio de información científica curado por expertos humanos, para esbozar el progreso realizado en la investigación epigenética e identificar conceptos y desafíos emergentes clave. Este análisis exhaustivo examina los fundamentos científicos, las aplicaciones clínicas y las innovaciones tecnológicas que impactan en las ciencias de la vida y la atención sanitaria modernas.
La plataforma CAS BioFinder Discovery reúne los datos y las soluciones necesarios en los flujos de trabajo de descubrimiento de fármacos, incluyendo la biología de descubrimiento y la química medicinal.
Más informaciónNuestro análisis reveló un crecimiento pronunciado y continuo en las publicaciones durante las últimas dos décadas, con más de 120.000 publicaciones relacionadas con la epigenética actualmente en la CAS Content Collection (véase la Figura 1). El campo está dominado por artículos de revistas (97%), mientras que las patentes representan solo el 3% de las publicaciones (véase la Figura 1A), lo que indica que la epigenética permanece en la fase de descubrimiento y validación.
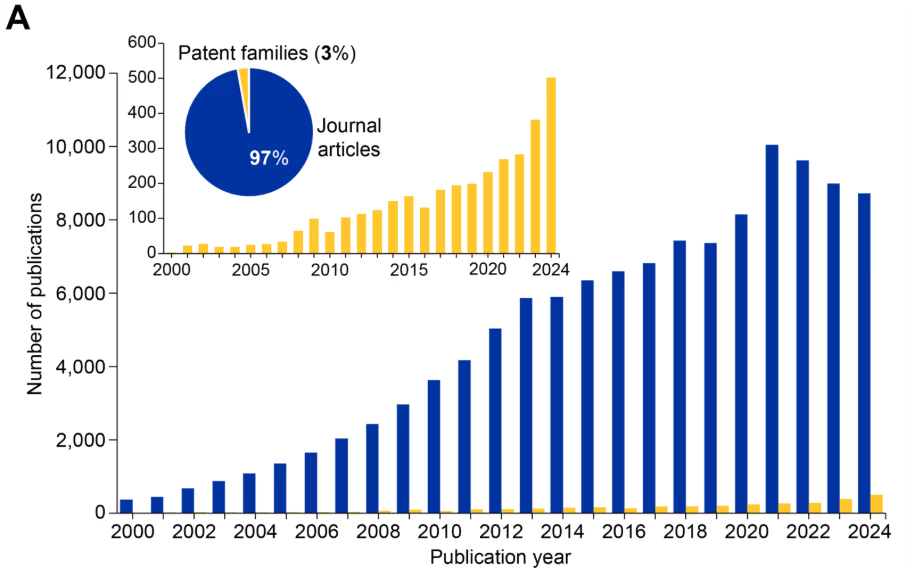
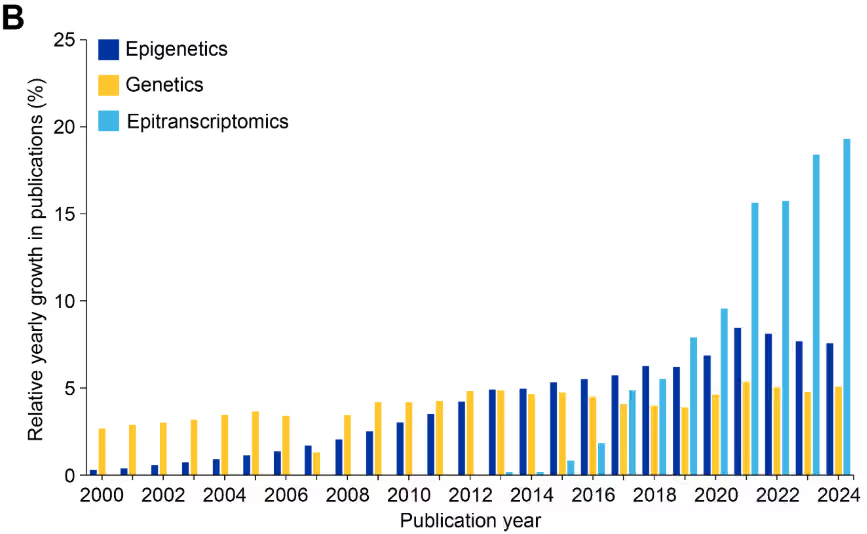
Sin embargo, el fuerte aumento en las publicaciones de patentes (véase el gráfico insertado en la Figura 1A) indica un creciente interés comercial y potencial traslacional en este campo en rápida evolución. Cabe destacar que las publicaciones sobre epigenética han superado a las de genética desde 2014 (Figura 1B). La aparición de la epitranscriptómica como un campo diferenciado es notable a partir de 2020 (Figura 1B).
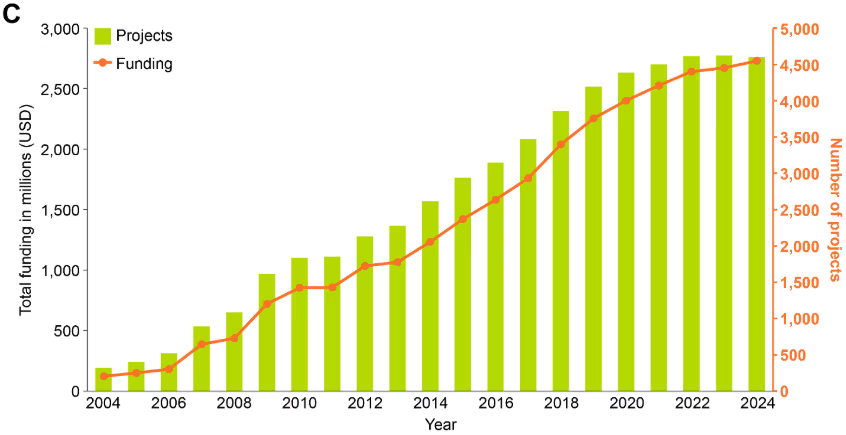
Esta trayectoria de crecimiento se alinea con aumentos sustanciales en la financiación: la financiación total para investigación pasó de 200 millones de dólares en 2004 a más de 4.500 millones de dólares en 2024, apoyando aproximadamente 2.700 proyectos al año (véase la Figura 1C). El aumento constante en el número de proyectos y en los niveles de financiación, con una financiación media por proyecto que pasó de 1,2 millones de dólares a 1,7 millones de dólares, subraya el compromiso sostenido del sector gubernamental y privado con el avance de la investigación epigenética y su traslación clínica.
La importancia comercial de la epigenética se ha expandido drásticamente, con un mercado global valorado en 1.840 millones de dólares en 2023 y una proyección de alcanzar los 6.770 millones de dólares para 2033. Este crecimiento está impulsado por más de diez fármacos epigenéticos aprobados por la FDA, incluyendo la azacitidina (Vidaza®) y el vorinostat (Zolinza®) para el tratamiento del cáncer. También hay más de 35 terapias epigenéticas en ensayos clínicos. Estos candidatos se dirigen predominantemente a diversas neoplasias, pero están empezando a diversificarse más allá del cáncer.
Exploremos la epigenética con más detalle para comprender cómo está evolucionando y qué significa para el futuro de la medicina:
Mecanismos fundamentales de la regulación epigenética
Los mecanismos epigenéticos regulan la expresión génica mediante modificaciones químicas del ADN y la estructura de la cromatina sin alterar la secuencia del ADN. Estos mecanismos comprenden cuatro clases principales: metilación del ADN, modificaciones de histonas, regulación por ARN no codificante (ARNnc) y remodelación de la cromatina. Al examinar las publicaciones relacionadas con la epigenética, observamos pocas publicaciones que abordaran estos mecanismos al principio, un resultado comprensible dado que el campo se estaba estableciendo a principios de la década de 2000 (véase la Figura 2).
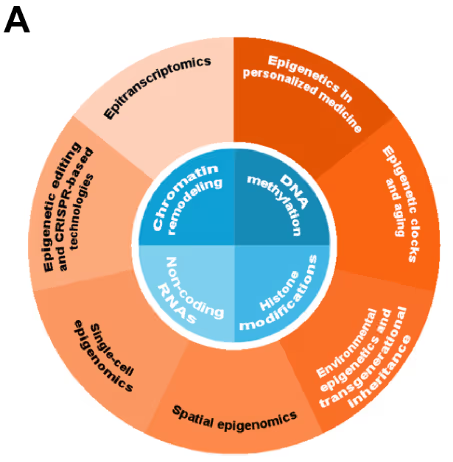
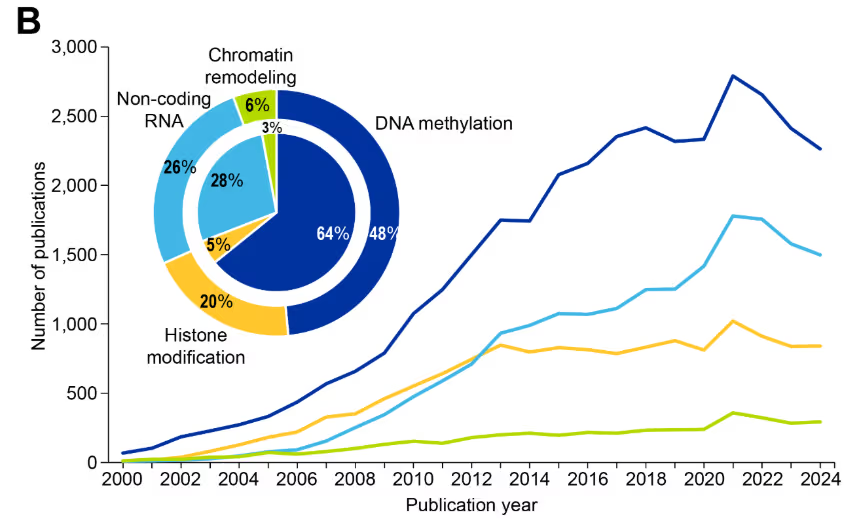
Posteriormente, los cuatro mecanismos mostraron un crecimiento acelerado, siendo la metilación del ADN la que experimentó el aumento más pronunciado y llegó a dominar el panorama de la investigación, tanto en términos de publicaciones en revistas como de patentes. Todos los demás mecanismos también experimentaron un incremento, lo que sugiere el creciente reconocimiento de las dianas epigenéticas para el desarrollo de fármacos.
Metilación del ADN
La metilación del ADN es un mecanismo epigenético fundamental que consiste en la adición de grupos metilo (–CH₃) a los anillos de citosina en los dinucleótidos CpG del ADN, lo que da lugar a la represión transcripcional. Esta modificación desempeña un papel crítico en la inactivación del cromosoma X, la impronta genómica y la supresión de transposones.
La metilación del ADN es catalizada por las ADN metiltransferasas (DNMT). La DNMT1 mantiene los patrones de metilación existentes durante la replicación, mientras que la DNMT3a/3b establece nuevos patrones de metilación durante el desarrollo o en respuesta a señales ambientales. La DNMT3L, que carece de actividad catalítica y se expresa principalmente en las primeras etapas del desarrollo, se restringe a las células germinales y al timo en la edad adulta. Las DNMT se dirigen a las islas CpG, regiones con una alta frecuencia de dinucleótidos CpG, situadas a menudo cerca de los promotores génicos.
Se han identificado patrones de metilación aberrantes en diversas enfermedades, como el cáncer, las enfermedades cardiovasculares, los trastornos de salud mental, la enfermedad de Alzheimer, el autismo y los síndromes metabólicos. La hipermetilación de los promotores de los genes supresores de tumores silencia su expresión, lo que favorece la oncogénesis, mientras que la hipometilación global puede activar oncogenes y provocar inestabilidad genómica. Los patrones de metilación del ADN cambian con la edad, lo que incluye la acumulación de errores y la pérdida de fidelidad en el mantenimiento de la metilación.
Modificaciones de las histonas
Las modificaciones de las histonas pueden heredarse a través de la división celular y verse influidas por factores ambientales, lo que puede repercutir en el desarrollo y en los estados patológicos. Las modificaciones postraduccionales de las histonas, como la acetilación, la metilación, la fosforilación y la ubiquitinación, alteran la estructura de la cromatina y la accesibilidad de los genes. Las histona acetiltransferasas (HAT) y las desacetilasas (HDAC) regulan la acetilación catalizando la adición y eliminación de grupos acetilo de las histonas, mientras que las metiltransferasas (HMT) y las desmetilasas (HDM) controlan la metilación. Estas modificaciones se producen principalmente en los residuos de lisina, arginina, serina y treonina de las colas de las histonas, que son protuberancias del núcleo del nucleosoma con mayor accesibilidad.
Las modificaciones de las histonas afectan a la estructura de la cromatina, que es el ADN empaquetado alrededor de las proteínas histonas que regula la expresión génica, la reparación del ADN y la condensación cromosómica durante la mitosis. Las modificaciones aberrantes de las histonas pueden alterar los patrones de expresión génica y contribuir al desarrollo y metástasis de tumores, y están relacionadas con otras enfermedades y trastornos como el Alzheimer, la enfermedad de Huntington, el autismo, los cambios en la cromatina asociados al envejecimiento y la desregulación inmunitaria.
Estos cambios suelen formar un "código de histonas", en el que combinaciones de modificaciones en diferentes residuos actúan de forma sinérgica o antagónica para ajustar los estados de la cromatina. Constituyen un sistema dinámico y versátil para regular la estructura de la cromatina y la expresión génica, y su naturaleza reversible los convierte en objetivos prometedores para intervenciones terapéuticas.
ARN no codificantes (ARNnc)
Los ARNnc constituyen una clase diversa de moléculas reguladoras que desempeñan funciones críticas en la expresión génica y la dinámica de la cromatina sin codificar proteínas. Estos ARN ajustan el procesamiento génico dirigiéndose al ARN mensajero (ARNm) para su degradación o modulando la maquinaria transcripcional.
Han surgido tres clases como reguladores epigenéticos primarios: los microARN (miARN), los ARN largos no codificantes (lncARN) y los ARN que interactúan con PIWI (piARN). Estos ARNnc orquestan la regulación epigenética a través de cinco mecanismos principales:
- Remodelación de la cromatina: los lncARN reclutan complejos modificadores de la cromatina a loci genómicos específicos, influyendo en la estructura de la cromatina y en la expresión génica. Por ejemplo, el transcrito específico de inactivación del cromosoma X (XIST) media la inactivación del cromosoma X mediante el reclutamiento del complejo represor polycomb 2 (PRC2).
- Regulación transcripcional: los miARN y los lncARN modulan la transcripción interactuando con factores de transcripción o ARN polimerasas. Por ejemplo, el lncARN HOX transcript antisense intergenic RNA (HOTAIR) recluta al PRC2 para reprimir genes en un cromosoma diferente.
- Control postranscripcional: los miARN se unen a las regiones 3′ no traducidas (UTR) de los ARN mensajeros (ARNm) diana, lo que provoca su degradación o la inhibición de la traducción. Los lncARN pueden actuar como esponjas moleculares para secuestrar miARN, lo que impide que estos se dirijan a los ARNm.
- Modificación del ARN: algunos ARNnc guían la metilación del ARN (por ejemplo, N6-metiladenosina, m6A) o su edición, lo que afecta a la estabilidad y traducción del ARN.
- Defensa del genoma: los piARN y los siARN suprimen los elementos transponibles, protegiendo la integridad genómica. Los siARN pueden guiar la formación de heterocromatina en regiones con secuencias repetitivas.
Remodelación de la cromatina
La remodelación de la cromatina modifica dinámicamente la arquitectura de la cromatina entre estados de eucromatina (abierta, transcripcionalmente activa) y heterocromatina (condensada, transcripcionalmente silenciosa). La unidad básica de la cromatina es el nucleosoma, compuesto por ADN envuelto alrededor de un octámero de proteínas histonas. La remodelación de la cromatina es llevada a cabo por complejos dependientes de ATP, como las familias SWI/SNF (switch/sucrose nonfermentable), ISWI (imitation switch), las proteínas de unión CHD (chromodomain helicase DNA) y la familia INO80, que utilizan la hidrólisis de ATP para impulsar el reposicionamiento, la expulsión o la reestructuración de los nucleosomas.
Los mecanismos de remodelación incluyen el deslizamiento de nucleosomas, la expulsión/intercambio de histonas y la compactación/descompactación de la cromatina. Estos procesos funcionan junto con la metilación del ADN y las modificaciones de las histonas para regular la expresión génica, la diferenciación celular y el mantenimiento de la identidad.
La desregulación de la remodelación de la cromatina está relacionada con el cáncer, los trastornos neurológicos y las enfermedades del desarrollo. Por ejemplo, las mutaciones en remodeladores de la cromatina como el dominio de interacción rico en AT 1A (ARID1A) (un componente del complejo SWI/SNF) se observan frecuentemente en neoplasias. Los remodeladores de la cromatina representan objetivos terapéuticos prometedores para revertir la expresión génica aberrante. Por ello, la remodelación de la cromatina se reconoce como un mediador de las influencias ambientales (dieta, estrés, toxinas, etc.) sobre la expresión génica y la salud.
Avances recientes en epigenética
Los avances recientes han demostrado cómo las modificaciones epigenéticas, incluidas la metilación del ADN, las modificaciones de las histonas, la regulación de ncRNA y la remodelación de la cromatina, contribuyen a la patogenia de enfermedades, particularmente en el cáncer. La investigación emergente sobre los miARN y otros ncARN como reguladores epigenéticos ha identificado nuevas dianas terapéuticas, mientras que los avances en el perfil epigenético individual están contribuyendo al progreso de los enfoques de medicina personalizada. Las tendencias de publicación muestran los principales campos de interés (véase la Figura 3).
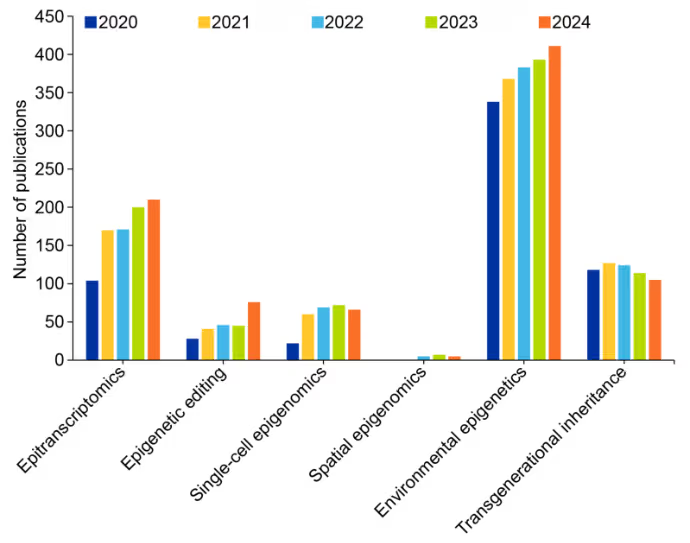
Epigenética ambiental
Factores ambientales como la dieta, el estrés, las toxinas y el estilo de vida pueden inducir cambios epigenéticos a través de los diversos mecanismos analizados anteriormente. Estas modificaciones podrían contribuir al desarrollo de enfermedades como el cáncer, los trastornos metabólicos y las afecciones neurológicas al alterar la función celular y la homeostasis tisular. Las influencias específicas incluyen:
- Disponibilidad de nutrientes (p. ej., folato, vitamina B12) que afectan a los patrones de metilación del ADN.
- Exposiciones químicas (p. ej., bisfenol A, pesticidas, contaminantes atmosféricos) que alteran las marcas epigenéticas y provocan consecuencias a largo plazo para la salud.
- Estrés psicológico y fisiológico que induce cambios epigenéticos en los genes de respuesta al estrés y modula la salud mental.
- Factores del estilo de vida (p. ej., tabaquismo, alcohol, niveles de actividad física) que influyen en el riesgo de enfermedad mediante la modulación de los estados epigenéticos.
Epitranscriptómica
La epitranscriptómica se centra en el estudio de las modificaciones químicas de las moléculas de ARN y su papel en la regulación de la expresión génica y las funciones celulares. Del mismo modo que la epigenética explora las modificaciones del ADN y las histonas que influyen en la actividad génica sin alterar la secuencia de ADN subyacente, la epitranscriptómica investiga cómo las modificaciones del ARN afectan a la estabilidad, la traducción, el empalme y otros procesos del ARN.
Se han identificado más de 170 modificaciones distintas del ARN en ARNm, ARNt, ARNr y ncARN, siendo la N6-metiladenosina (m6A) la modificación más abundante y estudiada en el ARNm eucariota. Las modificaciones clave incluyen: la metilación m6A en la posición N6 de la adenosina, que influye en la estabilidad, el empalme, la exportación y la traducción del ARNm; la metilación m5C en la posición N5 de la citosina en el ARNm y el ARNt, que afecta a la estabilidad y la traducción del ARN; la pseudouridina (Ψ), un isómero de la uridina, que mejora la estabilidad y la eficiencia de la traducción del ARN; y la desaminación de adenosina a inosina, que altera las propiedades de emparejamiento de bases y afecta al empalme y a la codificación de proteínas.
La maquinaria epitranscriptómica comprende tres clases principales de proteínas:
- "Escritores": enzimas que añaden modificaciones (p. ej., el complejo METTL3/METTL14 para la metilación m6A).
- "Borradores": enzimas que eliminan modificaciones (p. ej., la proteína asociada a la masa grasa y la obesidad (FTO) y el homólogo 5 de alkB, la ARN desmetilasa (ALKBH5) para la desmetilación m6A).
- "Lectores": proteínas que reconocen y se unen al ARN modificado (p. ej., proteínas del dominio YTH para el reconocimiento de m6A), que regulan colectivamente la dinámica de modificación del ARN.
Las modificaciones del ARN regulan múltiples procesos celulares, y la desregulación de estas modificaciones contribuye a diversas patologías. En el cáncer, las modificaciones m6A suelen estar alteradas en los tumores y vinculadas a la progresión tumoral, la metástasis y la resistencia a los fármacos. La edición y las modificaciones aberrantes del ARN se asocian con enfermedades neurodegenerativas, como el alzhéimer, el párkinson y la ELA. Además, los virus de ARN, incluidos el VIH y el SARS-CoV-2, explotan la maquinaria de modificación del ARN del huésped para regular la replicación viral y el escape inmunológico, incluidas las modificaciones epigenéticas.
Las tecnologías de secuenciación de alto rendimiento permiten el mapeo a escala genómica de las modificaciones del ARN, complementado con espectrometría de masas y técnicas de marcado químico para la detección y cuantificación de modificaciones. Estos avances facilitan el desarrollo terapéutico dirigido a las enzimas de modificación del ARN.
La orientación a componentes de la maquinaria de modificación del ARN (escritores, borradores y lectores) se está explorando como estrategia para el tratamiento de enfermedades. Por ejemplo, los inhibidores de FTO, que son desmetilasas m6A, han mostrado resultados prometedores en la terapia contra el cáncer, mientras que los nucleótidos modificados en las vacunas de ARNm mejoran la estabilidad y la eficiencia de la traducción.
En general, la investigación actual se centra en descifrar el "código epitranscriptómico", desarrollar herramientas para la manipulación precisa in vivo de las modificaciones del ARN y explorar las modificaciones en los ncARN. La epitranscriptómica unicelular está revelando patrones de modificación del ARN específicos de cada tipo celular y sus consecuencias funcionales. Una tecnología emergente, la integración multiómica, combina datos epigenómicos con transcriptómica, proteómica y metabolómica utilizando tecnologías como la integración CUT&RUN y Hi-C, proporcionando una visión holística de la función celular. Estos enfoques permiten un análisis exhaustivo de las vías y el descubrimiento de biomarcadores en enfermedades complejas.
Herencia transgeneracional
La herencia transgeneracional se refiere a la transmisión de cambios epigenéticos inducidos por el entorno a través de múltiples generaciones, independientemente de las alteraciones en la secuencia del ADN. Este fenómeno se ha observado en plantas y animales, lo que sugiere que las exposiciones ambientales experimentadas por una generación pueden afectar a la salud y el desarrollo de las generaciones posteriores. Sin embargo, verificar el alcance y la importancia de este proceso en los seres humanos resulta complejo.
Ejemplos de herencia epigenética transgeneracional incluyen el «Invierno del Hambre» holandés (1944-1945), donde se observaron patrones alterados de metilación del ADN y un mayor riesgo metabólico en las generaciones posteriores de individuos que estuvieron expuestos a la hambruna en los Países Bajos. Los estudios en animales también han proporcionado ejemplos de los efectos transgeneracionales de los disruptores endocrinos (por ejemplo, la vinclozolina) en la reproducción, el comportamiento y la susceptibilidad a enfermedades, mientras que en los seres humanos el tabaquismo paterno y el estrés materno se han relacionado con cambios epigenéticos en la descendencia.
Aunque los mecanismos que subyacen a la herencia epigenética transgeneracional no se comprenden del todo, su efecto en el aumento del perfil de riesgo de enfermedades como la obesidad, la diabetes y los trastornos cardiovasculares en los descendientes de individuos expuestos hace que siga siendo un área de investigación activa. Comprender los efectos transgeneracionales también puede fundamentar políticas destinadas a reducir la exposición a factores ambientales nocivos, especialmente durante periodos críticos del desarrollo (por ejemplo, el embarazo).
Edición epigenética y tecnologías basadas en CRISPR
La llegada de la tecnología CRISPR-Cas9 ha revolucionado la ingeniería genética, y su aplicación a la epigenética no es una excepción. La edición epigenética implica la modificación dirigida de marcas epigenéticas sin alterar la secuencia del ADN, lo que ofrece una herramienta potente para estudiar la regulación génica y desarrollar terapias novedosas.
El sistema CRISPR-Cas9 emplea ARN guía (gRNA) para dirigir la Cas9 catalíticamente inactiva (dCas9), fusionada con dominios efectores epigenéticos, a loci genómicos específicos. Los dominios efectores clave incluyen DNMT (por ejemplo, DNMT3A), desmetilasas de ADN (por ejemplo, TET1), modificadores de histonas (por ejemplo, p300, HDAC) y remodeladores de cromatina, lo que permite la adición o eliminación precisa de modificaciones epigenéticas.
La tecnología CRISPR-Cas9 permite la activación o represión selectiva de la expresión génica mediante la orientación a elementos reguladores, incluidos potenciadores y promotores, lo que permite a los investigadores probar directamente el papel causal de marcas epigenéticas específicas en la regulación génica, la diferenciación celular y las enfermedades. Además, permite examinar la herencia epigenética a través de las divisiones celulares, el desarrollo y la generación de modelos de enfermedades impulsados por la desregulación epigenética.
Las aplicaciones terapéuticas incluyen el silenciamiento de genes causantes de enfermedades (oncogenes, genes virales) y la reactivación de genes beneficiosos silenciados (supresores de tumores) en el cáncer y la hipercolesterolemia, entre otros. Este enfoque ofrece el potencial de terapias altamente personalizadas con efectos fuera de objetivo mínimos y aplicaciones en la reprogramación celular para la medicina regenerativa. Las ventajas clave de la edición del epigenoma basada en CRISPR incluyen una alta precisión de orientación, versatilidad mediante dominios efectores intercambiables y un menor riesgo mutagénico en comparación con la edición genética.
Caso práctico relacionado: Descubra cómo ChemLex colaboró con CAS para acceder a conjuntos de datos de alta calidad para la investigación impulsada por IA.
Leer el casoEl avance de esta tecnología requiere el desarrollo de variantes de Cas de alta fidelidad y diseños de gRNA optimizados para minimizar los efectos fuera de objetivo. Además, la orientación multiplexada permitirá la investigación de redes reguladoras complejas, mientras que los métodos de administración mejorados (vectores virales, nanopartículas) facilitarán la traslación clínica. Las tecnologías emergentes en este ámbito incluyen herramientas de edición del epigenoma, en particular los sistemas basados en CRISPR/dCas9 fusionados con efectores epigenéticos (DNMT, TET, HDAC). Las plataformas alternativas incluyen TALE549 y proteínas de dedos de zinc para la orientación específica a loci.
Epigenómica de célula única
Las tecnologías de epigenómica de célula única permiten perfilar las modificaciones epigenéticas con la resolución de células individuales. Esto proporciona una visión sin precedentes de la diversidad y la función celular, y supera los inconvenientes de los métodos tradicionales de secuenciación masiva, que analizan las marcas epigenéticas promedio en millones de células.
Técnicas como la ATAC-seq de célula única (análisis de cromatina accesible mediante transposasa con secuenciación) y la ChIP-seq de célula única (inmunoprecipitación de cromatina con secuenciación) perfilan la accesibilidad de la cromatina, y las modificaciones de histonas en células individuales se sitúan a la vanguardia de esta tendencia. Las aplicaciones incluyen el mapeo de paisajes epigenéticos durante la embriogénesis, la diferenciación celular y tisular, las decisiones sobre el destino celular y la heterogeneidad del sistema inmunitario.
En la investigación del cáncer, la epigenómica de célula única puede descubrir la heterogeneidad epigenética intratumoral relevante para la evolución clonal, la resistencia a los fármacos y la metástasis. La tecnología también se utiliza para dilucidar los cambios epigenéticos en el neurodesarrollo, la neurodegeneración y la diferenciación de células inmunitarias, lo que contribuye a nuestra comprensión de las enfermedades autoinmunes y las respuestas a la inmunoterapia.
Las direcciones futuras incluyen la integración con la transcriptómica espacial, el perfil temporal de las marcas epigenéticas en respuesta a procesos celulares o estímulos ambientales, y las aplicaciones clínicas para la identificación de biomarcadores y la medicina personalizada.
Epigenómica espacial
La epigenómica espacial es una tecnología de vanguardia que combina el estudio de las modificaciones epigenéticas con el contexto espacial dentro de los tejidos. Este enfoque tiende un puente entre la epigenómica de célula única y la histología, revelando cómo la regulación epigenética varía entre las regiones tisulares e influye en la organización, la función y la comunicación celular tanto en la salud como en la enfermedad.
Las aplicaciones incluyen el mapeo de patrones tisulares durante la organogénesis guiado por cambios epigenéticos; la identificación de firmas epigenéticas espacialmente distintas dentro de los tumores (núcleo frente a márgenes invasivos), que pueden impulsar la metástasis o la resistencia a los fármacos; la caracterización de cambios epigenéticos específicos de cada región en tejidos cerebrales o tipos celulares, lo que proporciona información sobre el neurodesarrollo, la plasticidad y las enfermedades neurodegenerativas; la comprensión de la regulación epigenética en los nichos de células inmunitarias; y la influencia de los estados epigenéticos en el microambiente tisular.
La epigenética en la salud y la enfermedad
Las modificaciones epigenéticas guían el desarrollo embrionario y las decisiones sobre el destino celular mediante la activación o el silenciamiento de conjuntos específicos de genes. La desregulación de estos procesos repercute en numerosas patologías y, aunque el cáncer ha sido el principal ámbito de investigación, se está explorando el papel de la epigenética en otras afecciones.
Cáncer
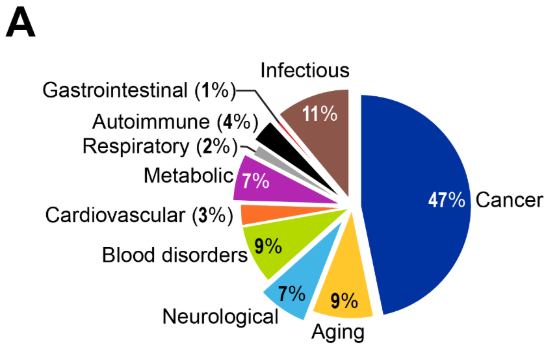
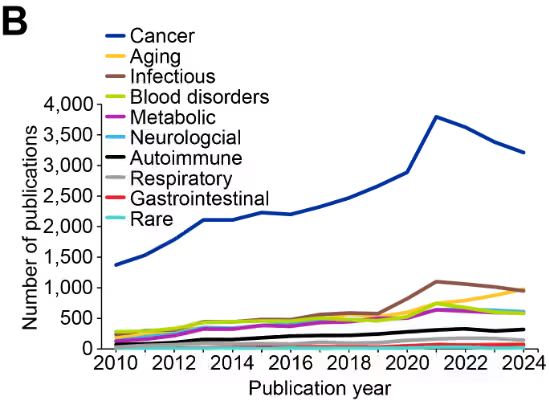
Las mutaciones genéticas han sido reconocidas durante mucho tiempo como motores del cáncer, y ahora se entiende que las alteraciones epigenéticas desempeñan un papel igualmente crítico en la tumorigénesis. El panorama de la investigación revela el predominio del cáncer con el 47% de las publicaciones, lo que refleja tanto la madurez del campo como el éxito de su traslación clínica (véase la Figura 4).
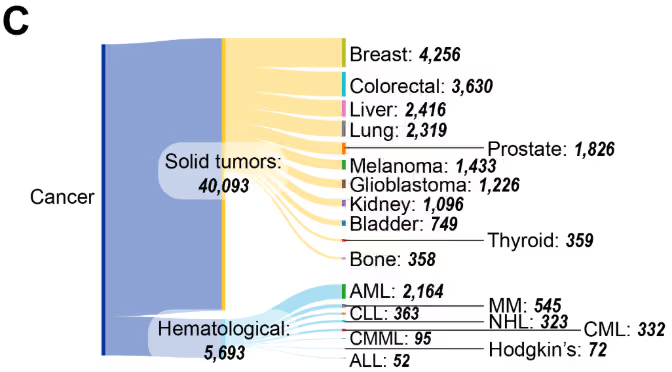
Los tumores sólidos representan la gran mayoría de las publicaciones (Figura 4C), siendo el cáncer de mama, colorrectal, de hígado y de pulmón los que lideran la actividad investigadora. Entre las neoplasias hematológicas, la leucemia mieloide aguda (LMA) es la predominante, seguida de la leucemia linfocítica crónica (LLC) y el mieloma múltiple (MM). Esta distribución, basada en los datos de publicaciones de la CAS Content Collection, se alinea con las terapias epigenéticas aprobadas por la FDA estadounidense que se dirigen a estas neoplasias, incluyendo la azacitidina y la decitabina, utilizadas para el tratamiento de la LMA, y el vorinostat para el linfoma cutáneo de células T.
La regulación epigenética en el cáncer implica tres mecanismos principales:
- Metilación del ADN: La hipermetilación de las regiones promotoras a menudo conduce al silenciamiento de los genes supresores de tumores, mientras que la hipometilación global puede activar oncogenes y promover la inestabilidad genómica.
- Modificaciones de las histonas: Las alteraciones en la acetilación, metilación y fosforilación de las histonas pueden modificar la estructura de la cromatina y la expresión génica.
- ARNnc: La desregulación de los miARN (por ejemplo, la sobreexpresión del miR-21) puede promover la progresión del cáncer al dirigirse a supresores de tumores u oncogenes.
El mapa de calor de coocurrencia entre genes y mecanismos epigenéticos mostrado en la Figura 5 revela patrones distintos. Por ejemplo, el predominio de la metilación del ADN refleja su papel como mecanismo epigenético importante. La remodelación de la cromatina muestra una coocurrencia mínima en la mayoría de los genes, lo que sugiere su papel en cambios arquitectónicos más amplios en lugar de una regulación específica de genes. Las publicaciones asociadas con los ARNnc y las modificaciones de las histonas se sitúan entre los dos extremos: la metilación del ADN y la remodelación de la cromatina.
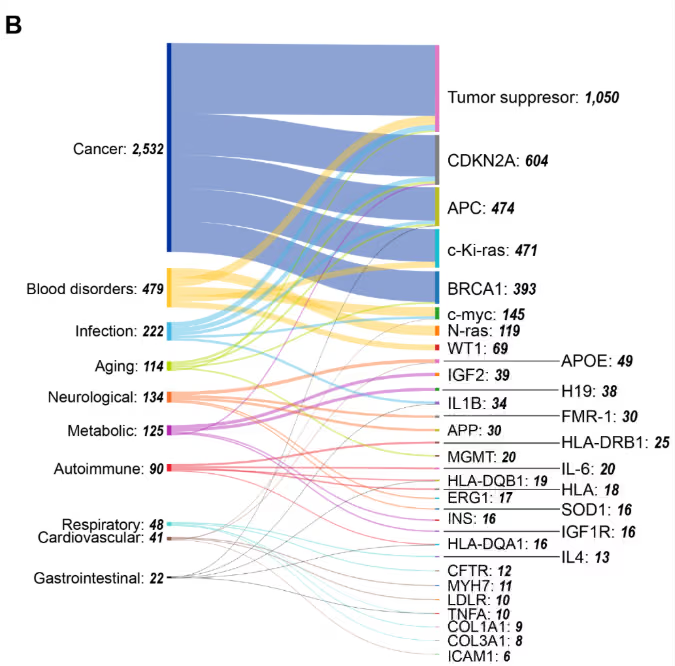

Nuestro análisis de las coocurrencias de genes y enfermedades (Figura 5B) ilustra la posición central del cáncer, siendo los genes supresores de tumores los que muestran la mayor conectividad. Otros genes con altas coocurrencias en múltiples tipos de cáncer incluyen CDKN2A, seguido de APC y c-Ki-ras (KRAS325). Este patrón refleja el papel de estos genes como centros epigenéticos sujetos a silenciamiento mediado por metilación en diversas neoplasias.
Relojes epigenéticos y afecciones relacionadas con el envejecimiento
Los relojes epigenéticos son un concepto innovador que utiliza modelos computacionales para predecir la edad biológica basándose en los patrones de metilación del ADN. Pueden revelar discrepancias entre la edad biológica y la edad cronológica de un individuo, proporcionando información sobre el proceso de envejecimiento y el impacto del estilo de vida y los factores ambientales. Estos modelos aprovechan los cambios predecibles en la metilación del ADN relacionados con la edad, donde regiones genómicas específicas se hipermetilan o hipometilan siguiendo patrones reproducibles.
El reloj epigenético de primera generación, el reloj de Horvath, fue desarrollado por Steve Horvath en 2013 y utiliza datos de metilación del ADN de 353 sitios CpG en múltiples tejidos y tipos celulares para estimar la edad biológica. El reloj de Hannum, desarrollado el mismo año, emplea 71 sitios CpG, principalmente en sangre. Relojes más recientes como GrimAge y PhenoAge incorporan biomarcadores adicionales (por ejemplo, proteínas plasmáticas) para mejorar la precisión y predecir la mortalidad y el riesgo de enfermedad.
En la investigación sobre la longevidad, los centenarios y las personas con una longevidad excepcional a menudo muestran un envejecimiento epigenético más lento, lo que proporciona pistas sobre los factores genéticos y ambientales que promueven un envejecimiento saludable. La investigación actual explora la reversibilidad mediante senolíticos y compuestos dirigidos a reguladores epigenéticos.
Las tendencias de las publicaciones de investigación observadas en la Figura 4A demuestran que el envejecimiento representa el 9% de la investigación epigenética que menciona explícitamente enfermedades y envejecimiento, una cifra significativamente menor que la investigación sobre el cáncer (47%), pero que muestra un crecimiento constante desde 2010 hasta 2024, especialmente notable después de 2019 (Figura 4B). Esta proporción refleja el papel especializado, aunque en expansión, de la investigación sobre el envejecimiento dentro del panorama epigenético más amplio dominado por las aplicaciones oncológicas.
Enfermedades neurodegenerativas
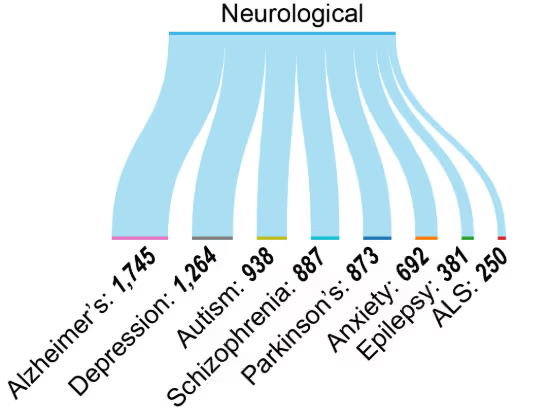
Las modificaciones epigenéticas se han relacionado con enfermedades neurodegenerativas como el alzhéimer, el párkinson y la ELA, así como con trastornos de salud mental como la depresión y la esquizofrenia (Figura 6). El sustancial volumen de investigación refleja el creciente reconocimiento de los mecanismos epigenéticos en las patologías neuropsiquiátricas y neurodegenerativas (véase la Figura 4A).
Las alteraciones epigenéticas afectan a los genes implicados en la producción de beta-amiloide (Aβ) y la fosforilación de la proteína tau en la enfermedad de Alzheimer, asociándose la desregulación de miARN como el miR-29352 y el miR-34354 con el deterioro cognitivo. La enfermedad de Parkinson muestra cambios epigenéticos en los genes de la función mitocondrial (por ejemplo, PINK1355) y en las vías de agregación de la α-sinucleína. Los patrones de acetilación de histonas y metilación del ADN se ven alterados en los modelos de la enfermedad de Parkinson, lo que afecta a la supervivencia neuronal.
Los trastornos del espectro autista presentan una desregulación de los genes sinápticos (por ejemplo, SHANK3360) a través de una metilación del ADN y unas modificaciones de histonas anómalas, y se ha demostrado que factores ambientales, como la exposición prenatal al ácido valproico, inducen cambios epigenéticos en modelos animales. En la epilepsia, los mecanismos epigenéticos regulan los genes de los canales iónicos y de la plasticidad sináptica, lo que contribuye a la susceptibilidad a las convulsiones, observándose modificaciones de histonas y una desregulación de los miARN. Los trastornos del neurodesarrollo ejemplifican una regulación epigenética crítica, como muestran las mutaciones en el gen MECP2, que codifica una proteína de unión a metil-CpG, causante del síndrome de Rett, y la hipermetilación de FMR1 en el síndrome del cromosoma X frágil.
Las alteraciones epigenéticas se reconocen cada vez más como biomarcadores de los trastornos neurológicos. Los patrones de metilación de genes como BDNF372 y COMT374 están asociados con la función cognitiva y los trastornos psiquiátricos, mientras que marcas de histonas específicas (por ejemplo, H3K27me3) están vinculadas a redes de regulación génica en la neurodegeneración. Los miARN circulantes, en particular miR-132376 y miR-124378, han demostrado su potencial como biomarcadores no invasivos para el diagnóstico de la enfermedad de Alzheimer y la enfermedad de Parkinson, respectivamente, lo que ofrece posibilidades para la detección precoz y el seguimiento terapéutico.
Enfermedades cardiovasculares
Los mecanismos epigenéticos contribuyen a la patogenia de diversas enfermedades cardiovasculares, aunque nuestro análisis de los datos de publicación sugiere un menor interés investigador en comparación con el cáncer (véase la Figura 4A). Por ejemplo, en la aterosclerosis, la metilación del ADN y las modificaciones de histonas regulan los genes implicados en la inflamación, el metabolismo de los lípidos y la función endotelial. La hipometilación de genes proinflamatorios (por ejemplo, IL-6384) y la hipermetilación de genes antiinflamatorios (por ejemplo, PPARγ385) favorecen la formación de placas.
Los cambios epigenéticos en los genes que regulan el tono vascular y la homeostasis del sodio contribuyen a la hipertensión, mientras que factores ambientales como una dieta rica en sal y el estrés pueden inducir estas alteraciones epigenéticas. La regulación epigenética de los genes de los canales iónicos (por ejemplo, SCN5A y KCNQ1392) puede predisponer a los individuos a sufrir arritmias. Del mismo modo, las modificaciones epigenéticas impulsan la remodelación cardíaca patológica, incluyendo la hipertrofia y la fibrosis. La metilación del ADN, las modificaciones de histonas y los miARN son reguladores clave de estos procesos. En la cardiopatía isquémica y el ictus, la metilación del ADN y las modificaciones de histonas alteran la expresión de los genes que controlan la supervivencia celular, las respuestas al estrés y las vías inflamatorias.
Al igual que ocurre con los trastornos neurológicos, estas alteraciones están cada vez más documentadas como biomarcadores. Los patrones de metilación de genes como F2RL3400 y AHRR401 están asociados con el riesgo y los resultados cardiovasculares. Marcas de histonas específicas están vinculadas a redes de regulación génica en la insuficiencia cardíaca y la aterosclerosis. Los miARN circulantes se utilizan como biomarcadores para el infarto agudo de miocardio y la insuficiencia cardíaca.
Trastornos metabólicos
Las modificaciones epigenéticas regulan los genes que controlan la sensibilidad a la insulina, el almacenamiento de grasa y la inflamación en las enfermedades metabólicas. Factores ambientales, como la dieta y el ejercicio, inducen cambios epigenéticos persistentes que contribuyen a la resistencia a la insulina y a la disfunción metabólica.
Las enfermedades metabólicas representan una parte considerable de la investigación epigenética (véase la Figura 4A), siendo los estudios sobre obesidad y diabetes tipo 2 los que predominan en este campo. El importante volumen de publicaciones refleja la epidemia mundial de enfermedades metabólicas y una creciente comprensión de las contribuciones epigenéticas a la disfunción metabólica. El crecimiento constante pero modesto de la investigación en epigenética metabólica es comparable al de los trastornos neurológicos y sanguíneos (Figura 4B), pero contrasta con el aumento exponencial de los estudios sobre el cáncer, lo que sugiere un importante potencial sin explotar en este ámbito.
Se ha descubierto que la epigenética desempeña un papel clave en:
- Obesidad: La metilación del ADN y las modificaciones de histonas regulan los genes de la adipogénesis, el control del apetito y el gasto energético, con miARN desregulados asociados a la obesidad y a la disfunción del tejido adiposo. La metilación del ADN y las modificaciones de histonas regulan los genes de la adipogénesis, el control del apetito y el gasto energético, asociándose miARN desregulados a la obesidad y a la disfunción del tejido adiposo.
- Diabetes tipo 2 (DT2): Cambios epigenéticos en las células β pancreáticas, el hígado y el músculo esquelético que afectan a la producción y sensibilidad a la insulina, incluyendo la metilación del ADN de los genes PPARGC1A e IRS1.
- Enfermedad del hígado graso no alcohólico (EHGNA): La metilación del ADN y las modificaciones de histonas regulan el metabolismo lipídico hepático y la inflamación, contribuyendo los miARN a la progresión de la enfermedad.
- Síndrome metabólico: Los cambios epigenéticos afectan a los genes del metabolismo de la glucosa, el metabolismo de los lípidos y la regulación de la presión arterial.
- Enfermedades cardiometabólicas: Los mecanismos epigenéticos vinculan la desregulación metabólica con las complicaciones cardiovasculares a través de la metilación del ADN de genes como FTO418 y ABCA1419, asociados al riesgo de aterosclerosis e hipertensión.
Los biomarcadores epigenéticos para las enfermedades metabólicas incluyen patrones de metilación de los genes TXNIP y SREBF1 asociados a la DT2 y la EHGNA; marcas de histonas específicas vinculadas a redes de regulación génica metabólica; y miARN circulantes que sirven como biomarcadores para la DT2 y la obesidad. Estos biomarcadores permiten la detección precoz, la estratificación del riesgo y el seguimiento terapéutico en los trastornos metabólicos.
Enfermedades autoinmunes
La metilación anómala de los genes de tolerancia inmunitaria puede activar las células T autorreactivas, lo que conduce a enfermedades autoinmunes. A pesar de su importancia clínica, las enfermedades autoinmunes representan una parte modesta de la investigación epigenética (véase la Figura 4A), con un crecimiento constante pero limitado entre 2010 y 2024 en comparación con el aumento exponencial de los estudios sobre el cáncer (Figura 4B). Esta brecha en la investigación sugiere un potencial significativo para ampliar la investigación en la epigenética de las enfermedades autoinmunes.
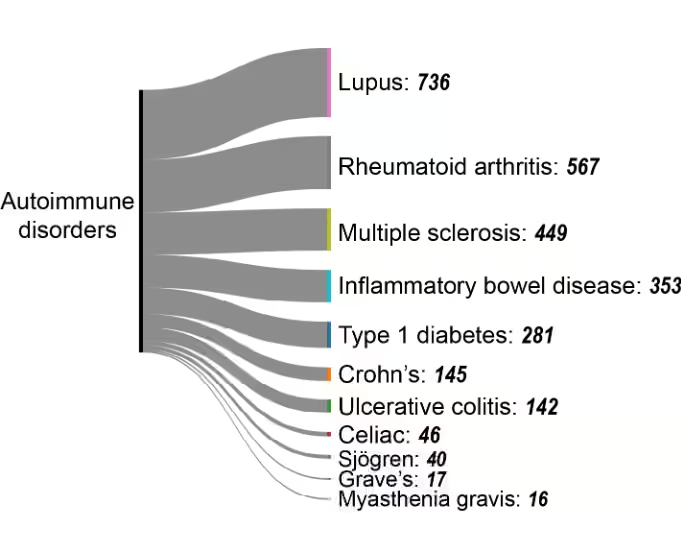
Dentro de las enfermedades autoinmunes, ciertas afecciones han surgido como áreas de investigación principales (Figura 7):
- Lupus eritematoso sistémico (LES): patogenia asociada a la desregulación de los miARN.
- Artritis reumatoide (AR): implica cambios en la metilación del ADN en fibroblastos sinoviales y células inmunitarias que promueven la inflamación articular, mientras que las modificaciones de las histonas regulan la producción de citocinas proinflamatorias.
- Esclerosis múltiple (EM): presenta cambios epigenéticos en las células T y B que afectan a la regulación inmunitaria y a los genes de destrucción de la mielina, con una desregulación de los miARN vinculada a la progresión de la enfermedad.
- Diabetes tipo 1 (DT1): implica cambios en la metilación del ADN y modificaciones de las histonas en las células β pancreáticas y en las células inmunitarias, lo que contribuye a la destrucción autoinmunitaria de las células productoras de insulina, con miARN (p. ej., miR-21, miR-34a) implicados en la patogenia.
- Enfermedad inflamatoria intestinal (EII), como la enfermedad de Crohn y la colitis ulcerosa, presenta cambios epigenéticos en las células epiteliales intestinales y en las células inmunitarias, lo que impulsa la inflamación crónica junto con una asociación con la desregulación de los miARN.
Terapéutica epigenética: aplicaciones clínicas de los fármacos epigenéticos
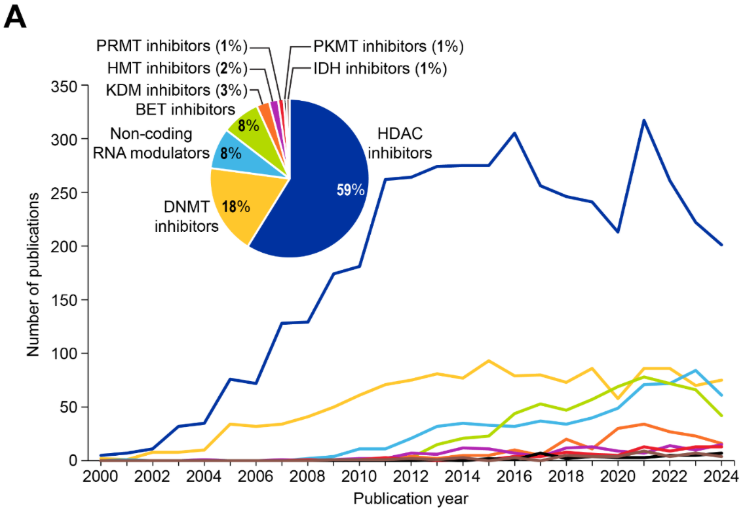
Los fármacos epigenéticos (epi-fármacos) revierten las modificaciones epigenéticas aberrantes para restaurar la expresión génica normal en enfermedades caracterizadas por una desregulación epigenética. El panorama terapéutico (véase la Figura 8A) revela que los inhibidores de la HDAC dominan con el 59 % de las publicaciones, seguidos por los inhibidores de la DNMT (18 %) y los moduladores del ARN (8 % cada uno para los moduladores de ARNnc).
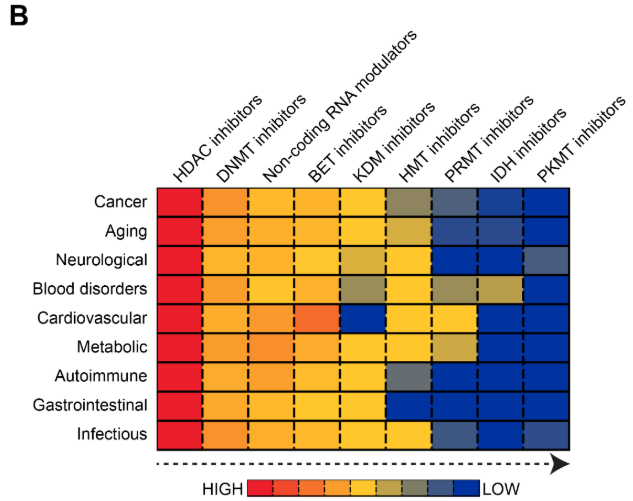
Epi-fármacos actuales:
- Los inhibidores de la histona desacetilasa (HDAC) impiden la eliminación de los grupos acetilo de las histonas, lo que favorece estructuras de cromatina relajadas y una mayor expresión génica, incluidos los genes supresores de tumores. Los inhibidores de la HDAC también afectan a proteínas no histónicas, como los factores de transcripción y las proteínas chaperonas, lo que contribuye aún más a sus efectos anticancerígenos.
- Los inhibidores de las ADN metiltransferasas (DNMT) representan la segunda clase de fármacos más importante en cuanto a publicaciones de investigación asociadas. Bloquean las DNMT, ayudando así a la reactivación de genes supresores de tumores silenciados en el cáncer. Los inhibidores de la DNMT aprobados actualmente para uso clínico son la azacitidina (Vidaza®) y la decitabina (Dacogen®), que son análogos de nucleósidos que se incorporan al ADN durante la replicación, se unen irreversiblemente a las DNMT e impiden la metilación.
- Los moduladores de ARNnc se dirigen a los miARN o lncARN para influir en la regulación génica. Los moduladores del ARN parecen ser una categoría de rápido crecimiento, especialmente desde 2018 (Figura 8A), lo que refleja el reconocimiento de los miARN y los lncARN como dianas farmacológicas para la medicina de precisión.
- Los inhibidores del bromodominio y dominio extra-terminal (BET) bloquean la unión de las proteínas BET a las histonas acetiladas, interrumpiendo la activación transcripcional de los oncogenes. Las proteínas BET (p. ej., BRD2, BRD3, BRD4) participan en el reconocimiento y la unión de lisinas acetiladas en las histonas y actúan como "lectores" de marcas epigenéticas.
- Los inhibidores de las histona lisina desmetilasas (KDM) bloquean las enzimas pertenecientes a las lisina desmetilasas (LSD) o a la familia de enzimas N-metil lisina desmetilasas que contienen el dominio Jumonji (JmjC). Hasta la fecha no se han aprobado inhibidores de la KDM; sin embargo, un inhibidor de la KDM4 se encuentra actualmente en un ensayo clínico (zavondemstat) y hay investigaciones en curso dirigidas a desarrollar más.
- Los inhibidores de la histona metiltransferasa (HMT) se dirigen a las enzimas que añaden grupos metilo a residuos específicos de lisina o arginina en las proteínas histónicas, lo que puede activar o reprimir la expresión génica dependiendo de la histona específica y de la ubicación de la metilación.
- Los inhibidores de la proteína arginina metiltransferasa (PRMT) se dirigen a las proteínas metiltransferasas, enzimas responsables de añadir grupos metilo a las proteínas e influir en la expresión génica y en los procesos celulares. Los inhibidores de la HMT y los inhibidores de la proteína metiltransferasa, como los inhibidores de la PRMT y la PKMT, se encuentran en una fase inicial de desarrollo, mientras que los inhibidores de la KDM muestran un potencial terapéutico emergente.
- Los inhibidores de la isocitrato deshidrogenasa (IDH) se dirigen a las formas mutantes de las enzimas IDH, como la IDH1 y la IDH2, que producen el oncometabolito 2-hidroxiglutarato. Estas enzimas provocan la hipermetilación del ADN y bloquean la diferenciación celular al acumularse en las células e inhibir las enzimas implicadas en la regulación epigenética, como las proteínas TET y las histona desmetilasas.
- Los inhibidores del homólogo 2 del potenciador de zeste (EZH2) funcionan como inhibidores específicos de la HMT, reduciendo los niveles de H3K27me3 y reactivando los genes supresores de tumores silenciados, lo que puede restaurar la diferenciación celular normal e inhibir el crecimiento tumoral, particularmente en cánceres con mutaciones o sobreexpresión de EZH2.
- Los moduladores de acción dual o multiepigenéticos combinan mecanismos que se dirigen a múltiples vías epigenéticas. Estos fármacos pueden mejorar la eficacia terapéutica en enfermedades complejas.
Análisis de coocurrencia
El panorama clínico de la terapéutica epigenética muestra un éxito regulatorio, con 13 fármacos aprobados por la FDA estadounidense que se dirigen a reguladores epigenéticos clave (véase la Figura 9).
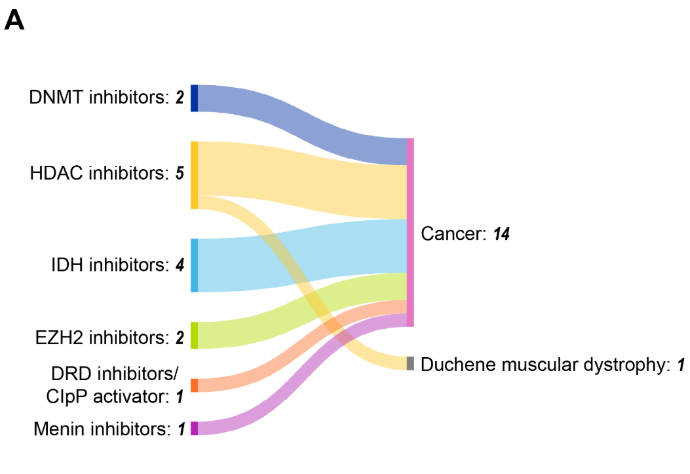
Los inhibidores de la HDAC lideran con cinco aprobaciones, y las neoplasias hematológicas representan la principal aplicación terapéutica, lo que supone 12 de las 15 indicaciones aprobadas. Esta concentración refleja la sensibilidad de los cánceres hematológicos a la desregulación epigenética y la accesibilidad de las dianas hematológicas en comparación con los tumores sólidos.
Los inhibidores de la DNMT azacitidina (2004) y decitabina (2006) estuvieron entre los primeros fármacos epigenéticos aprobados, estableciendo la prueba de concepto para abordar la metilación del ADN en síndromes mielodisplásicos y LMA. Los inhibidores de la HDAC, incluidos vorinostat, romidepsina y belinostat, han demostrado eficacia en múltiples neoplasias hematológicas, validando la modificación de histonas como diana terapéutica.
Fármacos epigenéticos en ensayos clínicos
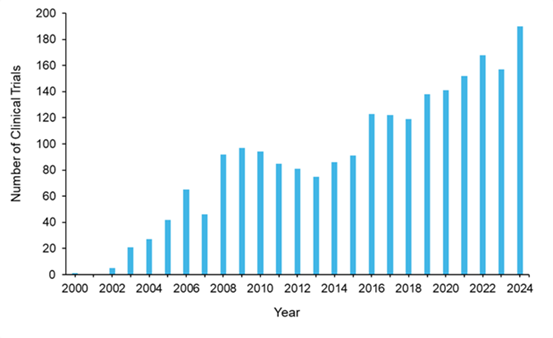
El panorama de los fármacos epigenéticos en ensayos clínicos se ha expandido drásticamente a lo largo de 25 años, con cerca de 2200 ensayos registrados en clinicaltrials.gov (véase la Figura 10). Se ha producido un aumento sostenido desde un único ensayo en el año 2000 hasta algo menos de 200 ensayos clínicos al año en 2024, con oscilaciones notables que reflejan hitos regulatorios y dinámicas de mercado. Tras la aprobación de la azacitidina por la FDA estadounidense en 2004, la actividad de los ensayos mostró patrones de altibajos con una trayectoria general ascendente. Este patrón de crecimiento indica una inversión farmacéutica sostenida a pesar de las fases periódicas de consolidación.
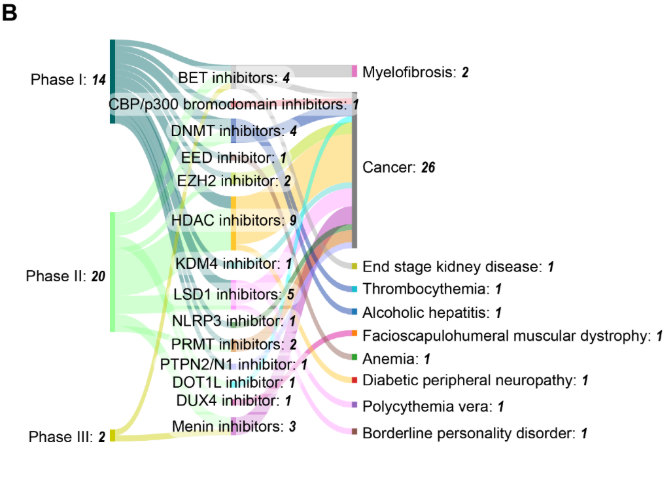
El análisis de los ensayos clínicos epigenéticos terapéuticos con respecto a la distribución por fases revela que los ensayos de Fase II predominan con un 57%, seguidos de la Fase I (32%) y la Fase III (9%). Esta distribución es típica del desarrollo de fármacos y refleja la alta tasa de abandono en el desarrollo de fármacos epigenéticos y la naturaleza exploratoria de muchas estrategias de combinación. Cabe destacar que el 62% de los ensayos involucran fármacos aprobados por la FDA estadounidense, lo que sugiere amplios esfuerzos de expansión de etiquetas y la exploración de terapias combinadas más allá de las indicaciones iniciales. El 38% restante de los ensayos clínicos corresponde a fármacos nuevos o novedosos no aprobados.
La cartera de desarrollo clínico revela una actividad sólida con 36 ensayos en curso en tres fases. Los ensayos de Fase II predominan (23 ensayos), y los inhibidores de DNMT y HDAC mantienen una fuerte presencia clínica con 4 y 11 ensayos, respectivamente. También existe una diversificación más allá de los inhibidores de DNMT y HDAC, con una exploración creciente de los inhibidores de LSD1, BET y menina (véase la Figura 9B). Esta distribución demuestra tanto la optimización continua de las dianas establecidas como la expansión hacia nuevos reguladores epigenéticos. Las aplicaciones oncológicas siguen predominando con 26 de los 36 ensayos, aunque los datos sugieren una alentadora diversificación hacia afecciones no oncológicas, como la trombocitemia, la hepatitis alcohólica, la mielofibrosis y la neuropatía periférica diabética.
Agentes prometedores en desarrollo clínico
De los diversos fármacos en desarrollo, varios destacan como prometedores para el cáncer y otras afecciones:
- Agentes oncológicos:
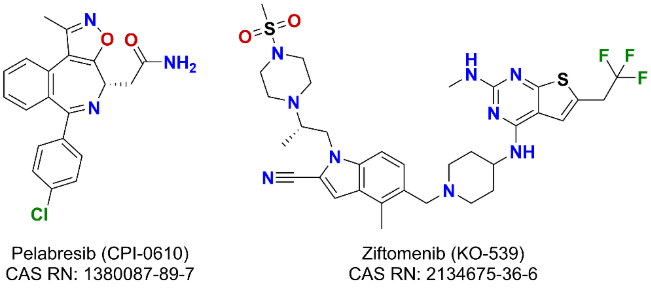
- Pelabresib (CPI-0610), un inhibidor avanzado de BET, alcanzó la Fase III de ensayos para la mielofibrosis.
- Ziftomenib (KO-539), un inhibidor selectivo de molécula pequeña de la interacción proteína-proteína menina-KMT2A, recibió la designación de Terapia Innovadora de la FDA estadounidense en marzo de 2024 para la LMA con mutación NPM1 recidivante o refractaria.
- Agentes no oncológicos:
- Apabetalone (RVX-208), un inhibidor selectivo de BET que se dirige a los dominios BD2, se encuentra actualmente en Fase I/II para la enfermedad renal terminal.
- Larsucosterol (DUR-928), un oxiesterol sulfatado endógeno y regulador epigenético primero en su clase, se encuentra en ensayos de Fase II para la hepatitis alcohólica.
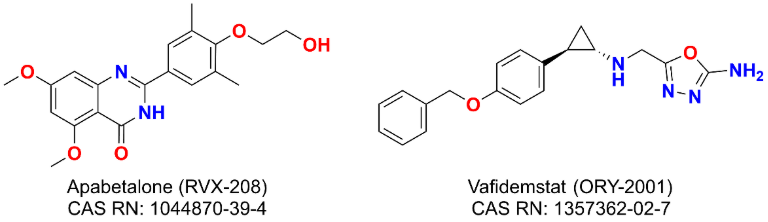
- Vafidemstat (ORY-2001) es un inhibidor selectivo de LSD1 que actualmente se está evaluando en ensayos clínicos de Fase II para el trastorno límite de la personalidad.
- Agentes aprobados recientemente:
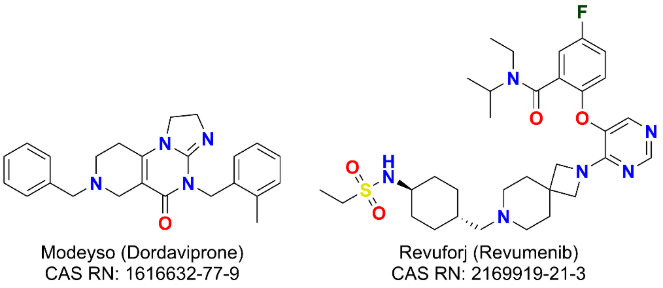
- Modeyso (Dordaviprone) recibió la aprobación acelerada de la FDA estadounidense en agosto de 2025 para gliomas difusos de línea media con mutación H3K27M en pacientes mayores de un año.
- Revuforj (Revumenib) obtuvo la aprobación de la FDA estadounidense en noviembre de 2024 para la LMA con reordenamiento de KMT2A en recaída o refractaria en pacientes adultos y pediátricos.
La epigenética en la medicina personalizada
La integración de datos epigenéticos contribuye al desarrollo de herramientas de diagnóstico, marcadores pronósticos y enfoques terapéuticos de alta precisión, especialmente para enfermedades complejas. Como se ha señalado, los fármacos epigenéticos, incluidos los inhibidores de la DNMT y de la HDAC, están clínicamente establecidos y siguen desarrollándose. Las terapias combinadas que integran fármacos epigenéticos con quimioterapia e inmunoterapia también están mejorando la eficacia del tratamiento, lo que representa un avance clave en los enfoques terapéuticos personalizados.
Otro avance clave en la epigenética es el uso de estas modificaciones como biomarcadores específicos de tejido. Ejemplos de estos patrones específicos de enfermedad incluyen la hipermetilación de genes supresores de tumores en cáncer, y la metilación aberrante y las modificaciones de histonas en pacientes con Alzheimer o enfermedad de Parkinson.
La identificación de estos biomarcadores epigenéticos permite la detección y el diagnóstico tempranos de enfermedades. Por ejemplo, esto podría lograrse mediante biopsias líquidas utilizadas para detectar patrones de metilación del ADN específicos del cáncer en sangre u otros fluidos corporales para un diagnóstico y seguimiento no invasivos, así como mediante pruebas prenatales a través de marcadores epigenéticos en sangre materna para evaluar la salud fetal. Desde el punto de vista pronóstico, los marcadores epigenéticos pueden predecir los resultados de la enfermedad y la respuesta a la terapia. Por ejemplo, el estado de metilación predice los resultados y la probabilidad de metástasis en algunos tipos de cáncer, mientras que los cambios epigenéticos en los trastornos psiquiátricos pueden predecir la respuesta a la medicación.
Aplicaciones clínicas de los biomarcadores epigenéticos
Los biomarcadores epigenéticos son importantes para el diagnóstico, el pronóstico y la toma de decisiones terapéuticas en enfermedades. Analizamos las publicaciones en la CAS Content Collection específicas sobre biomarcadores epigenéticos y observamos un fuerte aumento a partir de 2008-2009, marcado por algunos periodos de estancamiento (2015-2017 y 2023-2024) (véase la Figura 11).
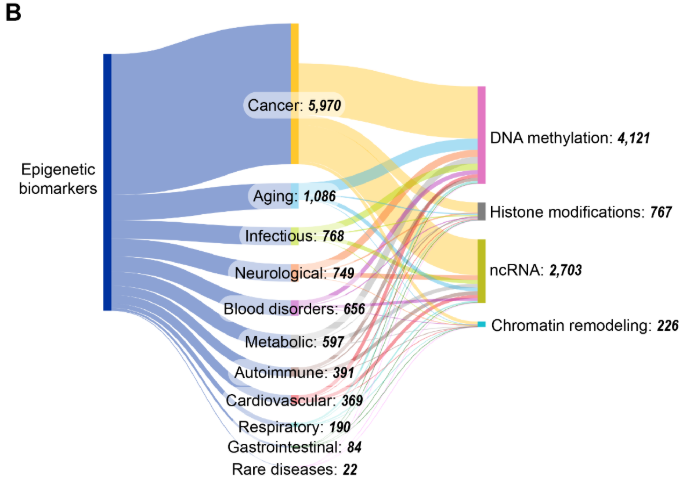
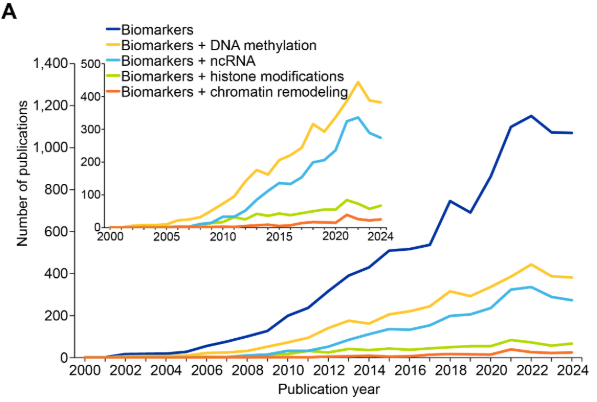
Entre los cuatro mecanismos epigenéticos principales, la metilación del ADN y el ARNnc parecen ser los más estudiados, con publicaciones relacionadas con biomarcadores de metilación del ADN y ARNnc que se duplicaron entre 2015 y 2022, mientras que las modificaciones de histonas y la remodelación de la cromatina siguen estando comparativamente menos exploradas en este contexto. Como se observa en la Figura 11B, el cáncer parece ser lo que más coocurre con las publicaciones relacionadas con biomarcadores epigenéticos, lo que refleja el papel bien establecido de la desregulación epigenética en la oncogénesis y la utilidad clínica de los marcadores de metilación como MGMT516 y VIM517 para el diagnóstico y el pronóstico. La representación sustancial de la investigación sobre el envejecimiento se alinea con los recientes avances en el desarrollo de relojes epigenéticos y sus aplicaciones en la evaluación de la edad biológica.
Biomarcadores de metilación del ADN
Los patrones aberrantes de metilación del ADN sirven como sellos distintivos de enfermedades; en particular, la hipermetilación de supresores tumorales es un biomarcador común de diversos tipos de cáncer. Por ejemplo, la metilación de SEPT9 permite el cribado no invasivo del cáncer colorrectal mediante detección en sangre como alternativa a la colonoscopia. La metilación de MGMT predice la respuesta a la temozolomida en el glioblastoma, asociándose la hipermetilación con mejores resultados. La metilación de BRCA1 sirve como marcador diagnóstico y pronóstico asociado a un mayor riesgo de cáncer de mama y de ovario. Cabe destacar que la metilación del ADN coocurre de forma más predominante con la investigación de biomarcadores epigenéticos, probablemente debido a su estabilidad química, metodologías de detección establecidas y traducción clínica directa a través de pruebas aprobadas por la FDA.
Biomarcadores de modificación de histonas
Las modificaciones de histonas influyen en la estructura de la cromatina y en la expresión génica, y existen marcas de histonas específicas asociadas a estados patológicos. La coocurrencia relativamente modesta de las modificaciones de histonas que observamos en la Figura 11B sugiere un potencial sin explotar, especialmente dada su naturaleza dinámica y su capacidad de respuesta a las intervenciones terapéuticas.
La pérdida de acetilación de la histona H4 predice un mal pronóstico en ciertos tipos de cáncer, mientras que la trimetilación de la lisina 27 de la histona H3 (H3K27me3) refleja la desregulación de PRC2 y se correlaciona con un mal pronóstico en el cáncer de próstata y de vejiga. La citrulinación de las histonas H3/H4 está relacionada con la producción de anticuerpos antiproteínas citrulinadas (ACPA), un sello distintivo de la artritis reumatoide que permite su diagnóstico y seguimiento.
A pesar de estos hallazgos prometedores, persisten desafíos como la naturaleza altamente lábil de las modificaciones de histonas y su susceptibilidad a la degradación enzimática, lo que provoca una rápida pérdida de señal a los pocos minutos de la recogida de la muestra. Los protocolos actuales requieren tampones de conservación especializados que contengan inhibidores de proteasas, desacetilasas y desmetilasas, lo que complica su implementación clínica rutinaria.
Biomarcadores de ARNnc
Los ARNnc, incluidos los miARN como miR-21529 y miR-155530, están sobreexpresados en diversos tipos de cáncer y sirven como biomarcadores diagnósticos y pronósticos a través de fluidos corporales. La sustancial coocurrencia de ARNnc con la investigación de biomarcadores epigenéticos refleja el creciente interés en los miARN y lncARN circulantes como biomarcadores mínimamente invasivos.
Por ejemplo, la sobreexpresión de miR-21 se asocia con el crecimiento tumoral, la invasión, la metástasis y la resistencia a la quimioterapia en el cáncer de mama, pulmón y colorrectal. Los niveles elevados de miR-208a sirven como biomarcador de infarto agudo de miocardio (ataque al corazón). La sobreexpresión del lncRNA HOTAIR también se asocia con metástasis y mal pronóstico en cánceres de mama, colorrectal y pancreático.
Biomarcadores de remodelación de la cromatina
Los patrones de remodelación de la cromatina predicen la resistencia terapéutica, utilizándose las regiones de cromatina abierta en células cancerosas resistentes a los fármacos para predecir el fracaso del tratamiento. Al igual que ocurre con las modificaciones de las histonas, la baja coocurrencia relativa de la remodelación de la cromatina sugiere un potencial aún por explotar.
En conjunto, el futuro de los biomarcadores epigenéticos reside en el desarrollo de tecnologías robustas de alto rendimiento y enfoques integradores. La integración multiómica, que combina datos epigenómicos, genómicos, transcriptómicos y proteómicos, mejorará el descubrimiento y la validación de biomarcadores. La detección no invasiva de biomarcadores epigenéticos en fluidos corporales revolucionará el diagnóstico precoz y el seguimiento.
Se espera que las herramientas computacionales avanzadas ayuden a identificar firmas epigenéticas complejas para la estratificación de los pacientes. Por ejemplo, la edición del epigenoma basada en CRISPR podría permitir la manipulación de marcas epigenéticas asociadas a enfermedades con fines terapéuticos, lo que podría convertir a los biomarcadores de herramientas diagnósticas en terapéuticas.
Implicaciones éticas, legales y sociales de la epigenética en la medicina
La epigenética tiene el potencial de transformar nuestra comprensión de la salud y la enfermedad, pero también plantea importantes desafíos éticos, legales y sociales. Abordar estos retos requiere un enfoque proactivo y colaborativo que equilibre los beneficios de la investigación epigenética con la necesidad de proteger los derechos individuales y promover la justicia social. Mediante el desarrollo de directrices éticas sólidas, protecciones legales y estrategias de participación pública, podemos aprovechar el poder de la epigenética para mejorar la salud y el bienestar, minimizando al mismo tiempo los posibles daños.
Consideraciones éticas
- Privacidad y discriminación: La información epigenética, al igual que los datos genéticos, es altamente personal y puede revelar información sensible sobre la salud, el estilo de vida y la exposición ambiental de un individuo, por lo que requiere una protección estricta de la privacidad. Por ejemplo, los marcadores epigenéticos que predicen el riesgo de enfermedad podrían facilitar la discriminación por parte de las aseguradoras de salud mediante el aumento de las primas o la denegación de cobertura. Del mismo modo, la capacidad de detectar modificaciones epigenéticas derivadas de comportamientos pasados plantea dudas sobre las evaluaciones de salud retroactivas y la discriminación laboral.
- Responsabilidad individual e impactos transgeneracionales: En este sentido, la información epigenética podría llevar a culpar a los individuos de sus problemas de salud, ignorando los determinantes sociales y ambientales más amplios. Los cambios epigenéticos inducidos por factores ambientales pueden transmitirse a veces a las generaciones futuras. Esto plantea preocupaciones éticas sobre las consecuencias a largo plazo de las intervenciones que alteran los marcadores epigenéticos.
Requisitos legales
- Supervisión normativa: La proliferación de kits de pruebas epigenéticas directas al consumidor plantea dudas sobre su precisión, interpretación y regulación. Los marcos legales deben garantizar que estas aplicaciones se basen en pruebas científicas y sean éticamente sólidas, evitando al mismo tiempo la comercialización prematura de tecnologías no probadas.
- Responsabilidad civil y propiedad intelectual: Las modificaciones epigenéticas vinculadas a la exposición ambiental plantean complejas cuestiones de responsabilidad. Por ejemplo, ¿debería la responsabilidad de los daños inducidos por toxinas recaer en los empleadores, los fabricantes o los gobiernos? La posible responsabilidad legal por daños epigenéticos al feto debido a negligencia de los padres o de terceros, o a exposiciones ambientales, requeriría una consideración cuidadosa. La comercialización de la investigación epigenética, como los biomarcadores o las terapias, plantea cuestiones sobre patentes y propiedad, lo que exige un equilibrio entre la innovación y el mantenimiento del acceso público a las tecnologías epigenéticas.
Implicaciones sociales
- Comprensión pública y equidad: La escasa comprensión pública de la epigenética facilita las ideas erróneas y la explotación a través de terapias no probadas (por ejemplo, las "dietas epigenéticas"). Una educación integral y una comunicación científica sólida son esenciales para abordar este problema y mejorar la toma de decisiones informada. La investigación epigenética que vincula las exposiciones ambientales con las enfermedades también puede contribuir a la estigmatización de determinadas comunidades o poblaciones, especialmente las expuestas a altos niveles de contaminación o toxinas. Garantizar un acceso equitativo a las terapias epigenéticas y evitar que se agraven las disparidades sanitarias requiere intervenciones políticas deliberadas que aborden las barreras socioeconómicas.
- Estrategias de implementación: Una gobernanza eficaz requiere directrices éticas claras para la recopilación, el uso y el intercambio de datos epigenéticos; marcos legales actualizados que aborden los desafíos únicos de la información epigenética; participación pública que fomente la confianza y el consentimiento informado; y cooperación internacional que garantice normas coherentes en todas las jurisdicciones. Al desarrollar protecciones sólidas y promover al mismo tiempo una innovación responsable, la sociedad puede aprovechar el potencial transformador de la epigenética salvaguardando los derechos individuales y promoviendo la equidad en salud.
Direcciones futuras de la epigenética
El panorama de la investigación epigenética ha experimentado una transformación notable en la última década, pasando de ser un área especializada de la biología molecular a una disciplina biomédica convencional con profundas implicaciones para la salud humana y la intervención terapéutica. La traslación clínica de la investigación epigenética ha logrado un éxito notable, con 15 fármacos aprobados por la FDA que validan los objetivos epigenéticos como terapéuticamente viables. Los 36 ensayos clínicos en curso en múltiples fases de desarrollo indican una inversión sostenida y confianza en las terapias epigenéticas, con una alentadora diversificación más allá de la oncología: los ensayos abarcan ahora enfermedades metabólicas, neurológicas, inflamatorias y raras.
Este cambio refleja el creciente reconocimiento de que factores ambientales como la dieta, el estrés, las toxinas y las elecciones de estilo de vida inducen cambios epigenéticos heredables con implicaciones transgeneracionales. La integración de los datos de exposición ambiental con los perfiles epigenéticos individuales permite una evaluación del riesgo y unas estrategias de intervención personalizadas, lo que representa un cambio fundamental hacia enfoques de medicina preventiva y de precisión.
El futuro de la epigenética es prometedor, con un inmenso potencial para avanzar en nuestra comprensión de la biología y mejorar la salud humana. Sin embargo, hacer realidad este potencial requerirá superar desafíos importantes, como las limitaciones tecnológicas, las preocupaciones éticas y la complejidad de la regulación epigenética. Al fomentar la colaboración interdisciplinaria, invertir en tecnologías innovadoras y abordar las implicaciones éticas y sociales, el campo de la epigenética puede seguir realizando descubrimientos revolucionarios y traducirlos en beneficios clínicos y sociales significativos.
Para obtener más información sobre el panorama de la epigenética, consulte nuestro artículo de revista revisado por pares.