
表观遗传学研究的是不涉及 DNA 序列改变的可遗传基因表达变化,它已成为生物学和医学领域的一门变革性学科,揭示了基因表达如何根据内部和外部信号进行调节。表观遗传调控是发育生物学、疾病发病机制、基因与环境相互作用、跨代遗传以及治疗开发的基础。通过阐明基因如何在静态基因组之外进行动态调节,表观遗传学将遗传学与环境影响联系起来,为疾病机制和创新治疗策略提供了深刻见解。
我们分析了CAS Content CollectionTM,这是全球最大的人工标引科学信息库,旨在概述表观遗传学研究的进展,并确定关键的新兴概念与挑战。这项综合分析审视了影响现代生命科学和医疗保健的科学基础、临床应用及技术创新。
CAS BioFinder Discovery Platform 汇集了药物发现工作流程(包括发现生物学和药物化学)所需的各类数据与解决方案。
了解更多我们的分析发现,过去二十年间相关出版物数量呈急剧且持续的增长,目前 CAS Content Collection 中已有超过 120,000 篇表观遗传学相关出版物(见图 1)。该领域以期刊文章为主(占 97%),专利仅占出版物总数的 3%(见图 1A),表明表观遗传学仍处于发现和验证阶段。
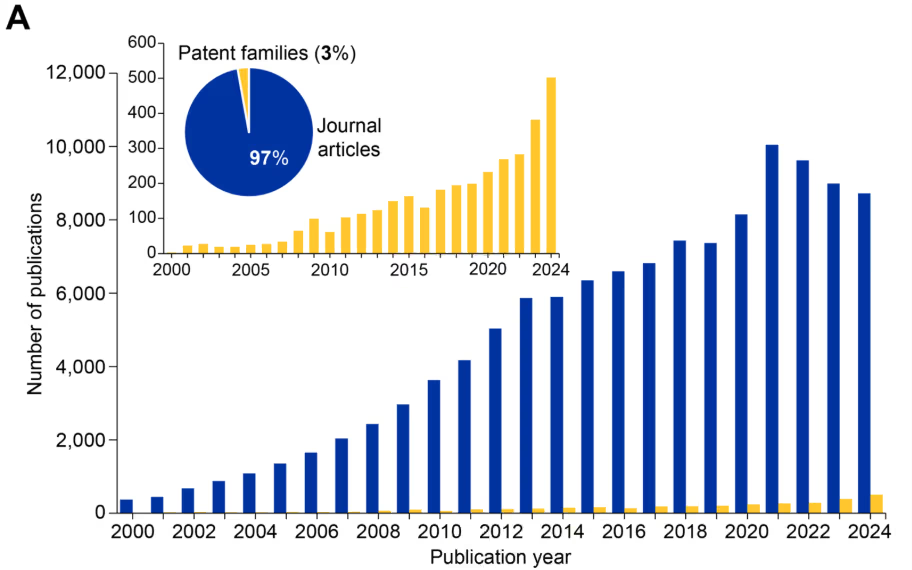
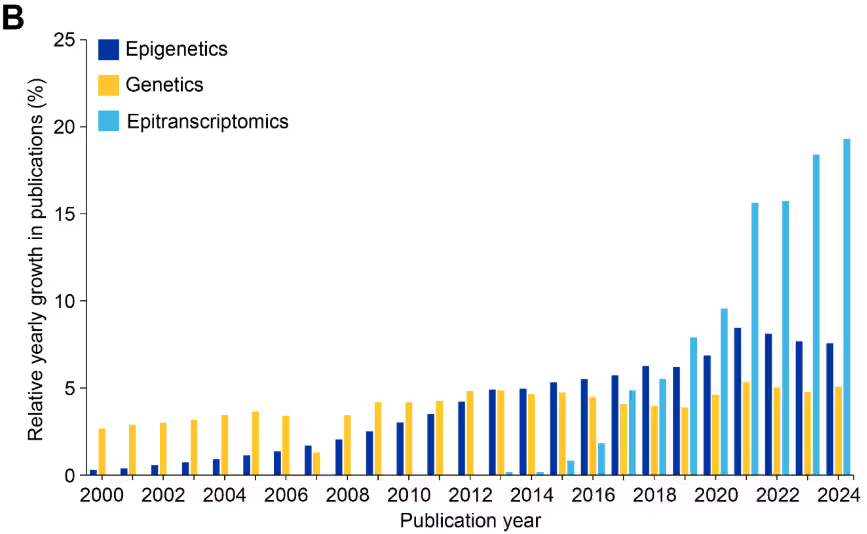
然而,专利出版物的急剧增加(见图 1A 插图)表明,这一快速发展的领域正受到越来越多的商业关注,并展现出巨大的转化潜力。值得注意的是,自 2014 年以来,表观遗传学出版物的数量已超过遗传学出版物(图 1B)。2020 年后,表观转录组学作为一门独立学科的兴起尤为显著(图 1B)。
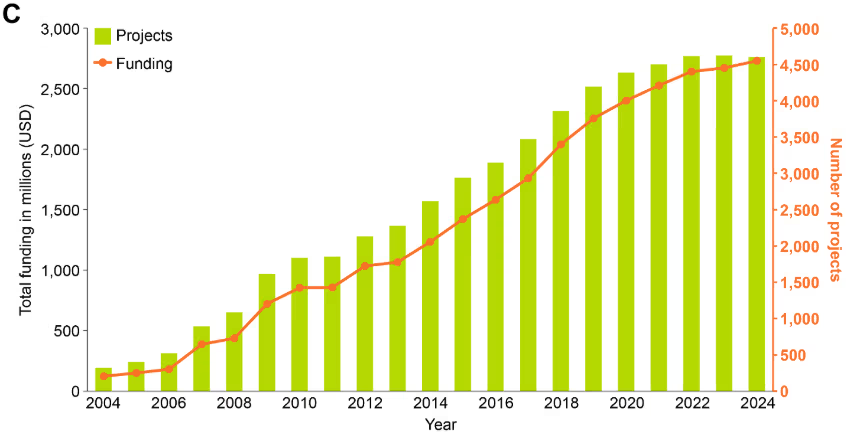
这一增长轨迹与研究经费的大幅增加相吻合——总研究经费从 2004 年的 2 亿美元增长到 2024 年的超过 45 亿美元,每年支持约 2,700 个项目(见图 1C)。项目数量和资助水平的持续上升(平均项目资助额从 120 万美元增加到 170 万美元),凸显了政府和私营部门对推进表观遗传学研究及其临床转化的持续承诺。
表观遗传学的商业重要性已显著扩大,全球表观遗传学市场规模在 2023 年达到 18.4 亿美元,预计到 2033 年将达到 67.7 亿美元。这一增长受到十多种 FDA 批准的表观遗传药物的推动,包括用于癌症治疗的阿扎胞苷(Vidaza®)和伏立诺他(Zolinza®)。此外,还有超过 35 种表观遗传疗法处于临床试验阶段。这些候选药物主要针对各种恶性肿瘤,但已开始呈现出超越癌症领域的多元化趋势。
让我们更深入地探讨表观遗传学,以了解其演变过程及其对未来医学的意义:
表观遗传调控的核心机制
表观遗传机制通过 DNA 和染色质结构的化学修饰来调节基因表达,而不改变 DNA 序列。这些机制包括四大类:DNA 甲基化、组蛋白修饰、非编码 RNA (ncRNA) 调控和染色质重塑。当我们审视表观遗传学相关出版物时,发现早期涉及这些机制的文献较少——考虑到该领域在 21 世纪初才刚刚建立,这是可以理解的结果(见图 2)。
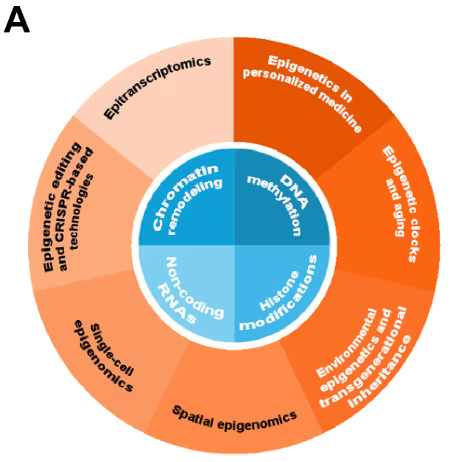
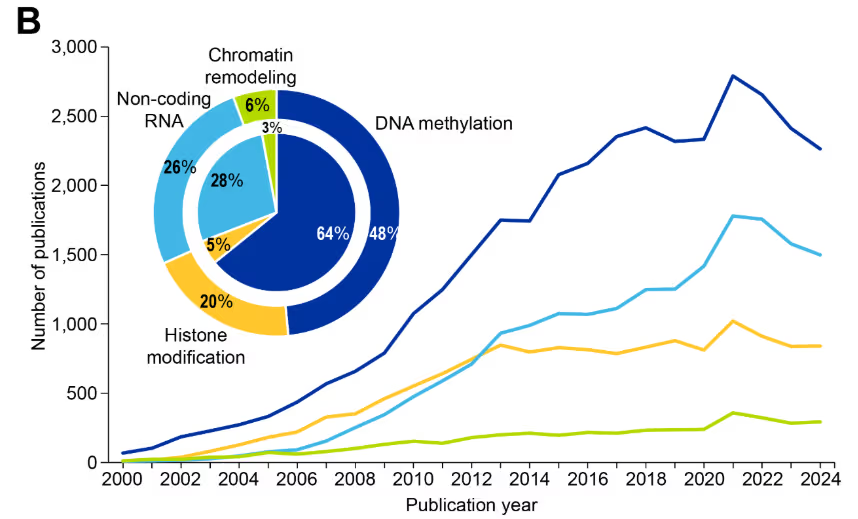
随后,所有四种机制均呈现加速增长态势,其中 DNA 甲基化的增幅最为显著,并在期刊和专利出版物方面占据了研究领域的主导地位。其他所有机制也均有所增长,这表明人们对作为药物开发靶点的表观遗传学机制的认可度正在不断提高。
DNA 甲基化
DNA 甲基化是一种基本的表观遗传机制,涉及将甲基(–CH₃)添加到 DNA 中 CpG 二核苷酸的胞嘧啶环上,从而导致转录抑制。这种修饰在 X 染色体失活、基因组印记和转座子抑制中起着关键作用。
DNA 甲基化由 DNA 甲基转移酶(DNMTs)催化。DNMT1 在复制过程中维持现有的甲基化模式,而 DNMT3a/3b 则在发育过程中或响应环境信号时建立新的甲基化模式。DNMT3L 缺乏催化活性,主要在早期发育阶段表达,在成年期仅限于生殖细胞和胸腺中表达。DNMTs 的靶点是 CpG 岛,即 CpG 二核苷酸频率较高的区域,通常位于基因启动子附近。
异常的甲基化模式已在多种疾病中被发现,包括癌症、心血管疾病、精神健康障碍、阿尔茨海默病、自闭症和代谢综合征。抑癌基因启动子的超甲基化会抑制其表达,从而促进肿瘤发生;而全基因组的低甲基化则可能激活癌基因并导致基因组不稳定性。DNA 甲基化模式会随年龄增长而改变,包括甲基化维持过程中错误的积累和保真度的丧失。
组蛋白修饰
组蛋白修饰可以通过细胞分裂遗传,并受环境因素影响,从而可能影响发育和疾病状态。翻译后组蛋白修饰(如乙酰化、甲基化、磷酸化和泛素化)会改变染色质结构和基因的可及性。组蛋白乙酰转移酶(HATs)和脱乙酰酶(HDACs)通过催化组蛋白上乙酰基的添加和去除来调节乙酰化,而甲基转移酶(HMTs)和去甲基化酶(HDMs)则控制甲基化。这些修饰主要发生在组蛋白尾部的赖氨酸、精氨酸、丝氨酸和苏氨酸残基上,这些尾部是从核小体核心突出的部分,具有更高的可及性。
组蛋白修饰影响染色质的结构,即包裹在组蛋白周围的 DNA,从而调节基因表达、DNA 修复和有丝分裂过程中的染色体凝缩。异常的组蛋白修饰会破坏基因表达模式,并导致肿瘤的发生和转移,同时还与其他疾病和障碍有关,如阿尔茨海默病、亨廷顿舞蹈症、自闭症、衰老相关的染色质变化以及免疫失调。
这些变化通常形成一种“组蛋白密码”,不同残基上的修饰组合通过协同或拮抗作用来微调染色质状态。它们是一个调节染色质结构和基因表达的动态且多功能的系统,其可逆性使其成为治疗干预的有希望的靶点。
非编码 RNA (ncRNAs)
ncRNAs 构成了一类多样化的调节分子,在不编码蛋白质的情况下,在基因表达和染色质动力学中发挥关键的调节作用。这些 RNA 通过靶向信使 RNA (mRNA) 进行降解或调节转录机制来微调基因加工。
三类 RNA 已成为主要的表观遗传调节因子:微小 RNA (miRNAs)、长链非编码 RNA (lncRNAs) 和 PIWI 相互作用 RNA (piRNAs)。这些 ncRNAs 通过五种主要机制协调表观遗传调节:
- 染色质重塑:lncRNAs 将染色质修饰复合物募集到特定的基因组位点,从而影响染色质结构和基因表达。例如,X 失活特异性转录本 (XIST) 通过募集多梳抑制复合物 2 (PRC2) 来介导 X 染色体失活。
- 转录调节:miRNAs 和 lncRNAs 通过与转录因子或 RNA 聚合酶相互作用来调节转录。例如,lncRNA HOX 转录反义基因间 RNA (HOTAIR) 募集 PRC2 以抑制不同染色体上的基因。
- 转录后控制:miRNAs 与靶信使 RNA (mRNAs) 的 3′ 非翻译区 (UTRs) 结合,导致降解或翻译抑制。lncRNAs 可以作为分子海绵来螯合 miRNAs,从而防止它们靶向 mRNAs。
- RNA 修饰:一些 ncRNAs 指导 RNA 甲基化(例如 N6-甲基腺苷,m6A)或编辑,从而影响 RNA 的稳定性和翻译。
- 基因组防御:piRNAs 和 siRNAs 抑制转座元件,保护基因组完整性。siRNAs 可以引导重复序列区域中异染色质的形成。
染色质重塑
染色质重塑动态改变了常染色质(开放、转录活跃)和异染色质(凝缩、转录沉默)状态之间的染色质架构。染色质的基本单位是核小体,由包裹在八聚体组蛋白上的 DNA 组成。染色质重塑由 ATP 依赖性复合物执行,例如 SWI/SNF、ISWI、CHD 结合蛋白和 INO80 家族,它们利用 ATP 水解来驱动核小体的重新定位、排出或重组。
重塑机制包括核小体滑动、组蛋白排出/交换以及染色质压缩/解压缩。这些过程与 DNA 甲基化和组蛋白修饰协同工作,以调节基因表达、细胞分化和身份维持。
染色质重塑失调与癌症、神经系统疾病和发育性疾病有关。例如,在恶性肿瘤中经常观察到染色质重塑因子(如 SWI/SNF 复合物的组成部分 AT 丰富相互作用域 1A,即 ARID1A)的突变。染色质重塑因子是逆转异常基因表达的有希望的治疗靶点。因此,染色质重塑被认为是环境影响(饮食、压力、毒素等)对基因表达和健康产生作用的介质。
表观遗传学的最新进展
近期研究表明,包括 DNA 甲基化、组蛋白修饰、非编码 RNA(ncRNA)调控和染色质重塑在内的表观遗传修饰如何导致疾病发病,尤其是在癌症领域。针对 miRNA 及其他 ncRNA 作为表观遗传调节因子的新兴研究已确定了新的治疗靶点,而个体化表观遗传图谱分析的进步也正在推动个性化医疗的发展。出版趋势显示了目前的主要研究领域(见图 3)。
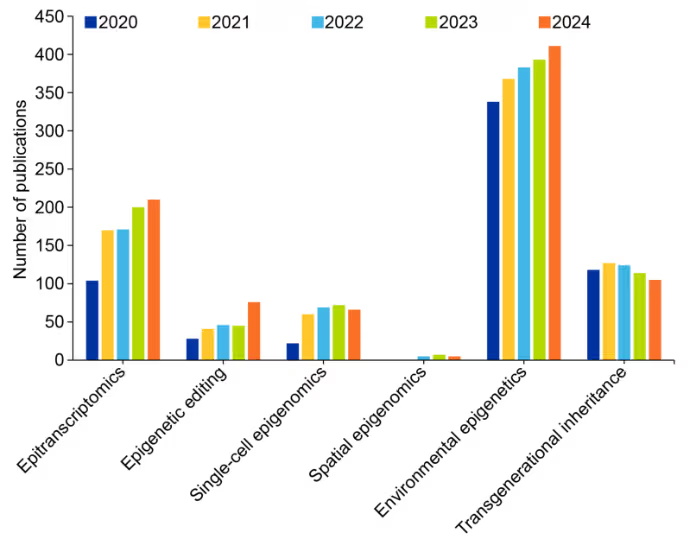
环境表观遗传学
饮食、压力、毒素和生活方式等环境因素可以通过 诱导 上述各种机制引发表观遗传变化。这些修饰可能通过改变细胞功能和组织稳态,导致癌症、代谢紊乱和神经系统疾病等病症的发生。具体影响包括:
- 营养物质的摄入(如叶酸、维生素 B12)会影响 DNA 甲基化模式。
- 化学物质暴露(如双酚 A、杀虫剂、空气污染物)会改变表观遗传标记,从而导致长期的健康后果。
- 心理和生理压力会诱导应激反应基因发生表观遗传变化,并调节心理健康。
- 生活方式因素(如吸烟、饮酒、体力活动水平)通过调节表观遗传状态影响疾病风险。
表观转录组学
表观转录组学 专注于 研究 RNA 分子的化学修饰及其在调节基因表达和细胞功能中的作用。正如表观遗传学探索影响基因活性但不改变 DNA 序列本身的 DNA 和组蛋白修饰一样,表观转录组学旨在研究 RNA 修饰如何影响 RNA 的稳定性、翻译、剪接及其他过程。
目前已鉴定出超过 170 种分布于 mRNA、tRNA、rRNA 和 ncRNA 中的不同 RNA 修饰,其中 N6-甲基腺苷(m6A)是真核生物 mRNA 中含量最丰富且研究最广泛的修饰。关键修饰包括:腺苷 N6 位点的 m6A 甲基化,影响 mRNA 的稳定性、剪接、输出和翻译;mRNA 和 tRNA 中胞嘧啶 N5 位点的 m5C 甲基化,影响 RNA 的稳定性和翻译;尿苷的异构体假尿苷(Ψ),可增强 RNA 的稳定性和翻译效率;以及腺苷脱氨基为肌苷,改变碱基配对特性并影响剪接和蛋白质编码。
表观转录组机制包含三大类蛋白质:
- “写入器”(Writers):负责添加修饰的酶(例如,用于 m6A 甲基化的 METTL3/METTL14 复合物)。
- “擦除器”(Erasers):负责去除修饰的酶(例如,用于 m6A 去甲基化的脂肪量和肥胖相关蛋白(FTO)以及 alkB 同源物 5,即 RNA 去甲基化酶(ALKBH5))。
- “读取器”(Readers):识别并结合修饰后 RNA 的蛋白质(例如,用于 m6A 识别的 YTH 结构域蛋白),它们共同调节 RNA 修饰的动态过程。
RNA 修饰调节多种细胞过程,这些修饰的失调会导致多种病理变化。在癌症中,m6A 修饰在肿瘤中常发生 改变,并与肿瘤进展、转移和耐药性相关。异常的 RNA 编辑和修饰与阿尔茨海默病、帕金森病和肌萎缩侧索硬化症(ALS)等神经退行性疾病有关。此外,包括 HIV 和 SARS-CoV-2 在内的 RNA 病毒会利用宿主的 RNA 修饰机制来调节病毒复制和免疫逃避,其中包括表观遗传修饰。
高通量测序技术实现了 RNA 修饰的全基因组图谱绘制,并辅以质谱和化学标记技术进行修饰的检测与定量。这些进展促进了针对 RNA 修饰酶的治疗药物开发。
针对 RNA 修饰机制组件(写入器、擦除器和读取器)的靶向治疗正被探索作为一种疾病治疗策略。例如,作为 m6A 去甲基化酶的 FTO 抑制剂在癌症治疗中展现出前景,而 mRNA 疫苗中的修饰核苷酸则增强了其稳定性和翻译效率。
总体而言,当前研究聚焦于破译“表观转录组密码”、开发用于精确 体内 操纵 RNA 修饰的工具,以及探索 ncRNA 中的修饰。单细胞表观转录组学正在揭示细胞类型特异性的 RNA 修饰模式及其功能后果。一种新兴技术——多组学整合,结合了表观基因组数据与 转录组学、蛋白质组学和代谢组学,利用 CUT&RUN 和 Hi-C 整合等技术,提供了细胞功能的整体视图。这些方法能够对复杂疾病进行全面的通路分析和生物标志物发现。
跨代遗传
跨代遗传是指 在不改变 DNA 序列的情况下,环境诱导的表观遗传变化在多代个体间的传递。这一现象已在动植物中得到观察,表明上一代所经历的环境暴露可能会影响后代的健康与发育。然而,在人类中验证这一过程的程度及其重要性仍面临挑战。
跨代表观遗传的例子包括 荷兰饥饿之冬(1944-1945 年)。当时,荷兰遭受饥荒影响的个体,其后代表现出 DNA 甲基化模式的改变以及代谢风险的增加。动物研究也提供了内分泌干扰物(如长春唑啉)对生殖、行为和疾病易感性产生跨代影响的案例;而在人类中,父亲吸烟和母亲压力已被证实与后代的表观遗传改变有关。
尽管跨代表观遗传的潜在机制尚未完全明确,但由于其会增加后代患肥胖、糖尿病和心血管疾病等疾病的风险,该领域仍是当前研究的热点。深入了解跨代影响,有助于制定相关政策,以减少在关键发育窗口期(如孕期)接触有害环境因素。
表观遗传编辑与基于 CRISPR 的技术
CRISPR-Cas9 技术的出现彻底改变了基因工程,其在 表观遗传学中的应用 也不例外。表观遗传编辑涉及在不改变 DNA 序列的前提下对表观遗传标记进行靶向修饰,这为研究基因调控和开发新型疗法提供了强有力的工具。
CRISPR-Cas9 系统利用向导 RNA (gRNA) 将融合了表观遗传效应结构域的催化失活 Cas9 (dCas9) 引导至特定的基因组位点。关键的效应结构域包括 DNMT(如 DNMT3A)、DNA 去甲基化酶(如 TET1)、组蛋白修饰酶(如 p300、HDACs)和染色质重塑因子,从而实现对表观遗传修饰的精确添加或去除。
CRISPR-Cas9 技术 通过靶向增强子和启动子等调控元件,能够选择性地激活或抑制基因表达,使研究人员能够直接验证特定表观遗传标记在基因调控、细胞分化和疾病中的因果作用。此外,它还允许研究跨细胞分裂、发育过程中的表观遗传遗传,以及由表观遗传失调引起的疾病模型。
治疗应用包括在癌症和高胆固醇血症等疾病中沉默致病基因(癌基因、病毒基因)以及重新激活有益的沉默基因(抑癌基因)。这种方法为高度个性化的治疗提供了潜力,且脱靶效应极小,并可应用于再生医学中的细胞重编程。基于 CRISPR 的表观基因组编辑的主要优势包括高靶向精度、通过可互换效应结构域实现的通用性,以及相较于基因编辑更低的致突变风险。
相关案例研究: 了解 ChemLex 如何与 CAS 合作,获取高质量数据集以推动人工智能驱动的研究。
阅读案例推进该技术需要开发高保真 Cas 变体并优化 gRNA 设计,以最大限度地减少脱靶效应。此外,多重靶向将有助于研究复杂的调控网络,而改进的递送方法(病毒载体、纳米颗粒)将促进临床转化。该领域的新兴技术包括表观基因组编辑工具,特别是融合了表观遗传效应因子(DNMTs、TETs、HDACs)的 CRISPR/dCas9 系统。其他平台还包括 TALE549 和用于位点特异性靶向的锌指蛋白。
单细胞表观基因组学
单细胞表观基因组技术 能够 在单个细胞的分辨率下对表观遗传修饰进行分析。这为理解细胞多样性和功能提供了前所未有的见解,并克服了传统批量测序方法(观察数百万个细胞的平均表观遗传标记)的局限性。
包括单细胞 ATAC-seq(转座酶可及染色质测序分析)和单细胞 ChIP-seq(染色质免疫共沉淀测序)在内的技术,处于这一趋势的前沿,可用于分析单个细胞中的染色质可及性和组蛋白修饰。其应用包括绘制胚胎发生、细胞和组织分化、细胞命运决定以及免疫系统异质性过程中的表观遗传图谱。
在癌症研究中,单细胞表观基因组学可以揭示与克隆进化、耐药性和转移相关的肿瘤内表观遗传异质性。该技术还被用于阐明神经发育、神经退行性变和免疫细胞分化过程中的表观遗传变化,从而加深我们对自身免疫性疾病和免疫治疗反应的理解。
未来的方向包括与空间转录组学的整合、针对细胞过程或环境刺激的表观遗传标记时间序列分析,以及在 生物标志物识别 和个性化医疗方面的临床应用。
空间表观基因组学
空间表观基因组学是一项前沿技术,它 将 表观遗传修饰的研究与组织内的空间背景相结合。这种方法架起了单细胞表观基因组学与组织学之间的桥梁,揭示了表观遗传调控如何在不同组织区域间变化,并影响健康与疾病状态下的细胞组织、功能和通讯。
其应用包括:绘制由表观遗传变化引导的器官发生过程中的组织模式;识别肿瘤内空间分布不同的表观遗传特征(核心区与浸润边缘),这些特征可能驱动转移或耐药性;表征脑组织或细胞类型中区域特异性的表观遗传变化,为神经发育、可塑性和神经退行性疾病提供见解;了解免疫细胞微环境中的表观遗传调控;以及表观遗传状态对组织微环境的影响。
表观遗传学与健康及疾病
表观遗传修饰通过激活或沉默特定的基因组,指导胚胎发育和细胞命运的决定。这些过程的失调会引发多种病理变化。尽管癌症一直是该领域研究的重点,但表观遗传学在其他疾病中的作用也正受到越来越多的关注。
癌症
长期以来,基因突变被认为是癌症的驱动因素,而目前人们已认识到表观遗传改变在肿瘤发生中同样起着至关重要的作用。研究格局显示,癌症相关文献占比高达 47%,这既反映了该领域的成熟度,也体现了其在临床转化方面的成功(见图 4)。
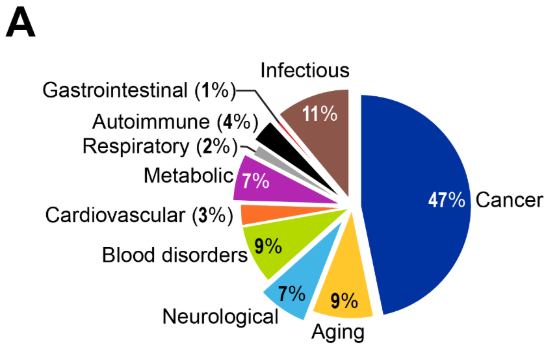
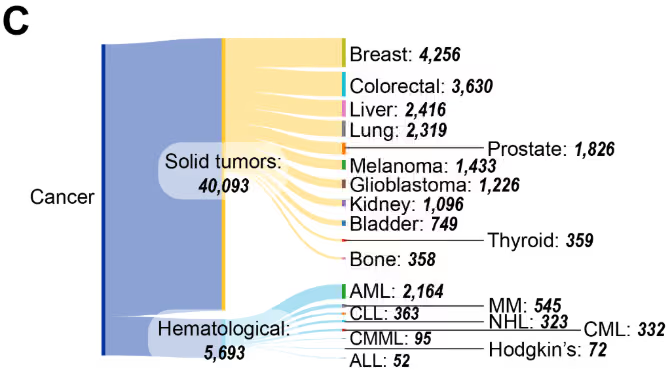
实体瘤占据了绝大多数文献(图 4C),其中乳腺癌、结直肠癌、肝癌和肺癌的研究最为活跃。在血液系统恶性肿瘤中,急性髓系白血病 (AML) 占据主导地位,其次是慢性淋巴细胞白血病 (CLL) 和多发性骨髓瘤 (MM)。基于 CAS 内容合集的文献数据,这一分布与美国 FDA 批准的针对这些恶性肿瘤的表观遗传疗法相吻合,包括用于治疗 AML 的阿扎胞苷 (azacitidine)和地西他滨 (decitabine),以及用于治疗皮肤 T 细胞淋巴瘤的伏立诺他 (vorinostat)。
癌症中的表观遗传调控涉及三种主要机制:
- DNA 甲基化: 启动子区域的超甲基化通常导致抑癌基因沉默,而全基因组范围内的低甲基化则可能激活癌基因并促进基因组不稳定性。
- 组蛋白修饰: 组蛋白乙酰化、甲基化和磷酸化的改变可以改变染色质结构并影响基因表达。
- 非编码 RNA (ncRNA): miRNA 的失调(例如 miR-21 过表达)可通过靶向抑癌基因或癌基因促进癌症进展。
图 5 所示的基因与表观遗传机制共现热图揭示了独特的模式。例如,DNA 甲基化的主导地位反映了其作为重要表观遗传机制的作用。染色质重塑在大多数基因中的共现率极低,表明其作用更倾向于广泛的结构性改变,而非针对特定基因的调控。与 ncRNA 和组蛋白修饰相关的文献则处于 DNA 甲基化和染色质重塑这两个极端之间。
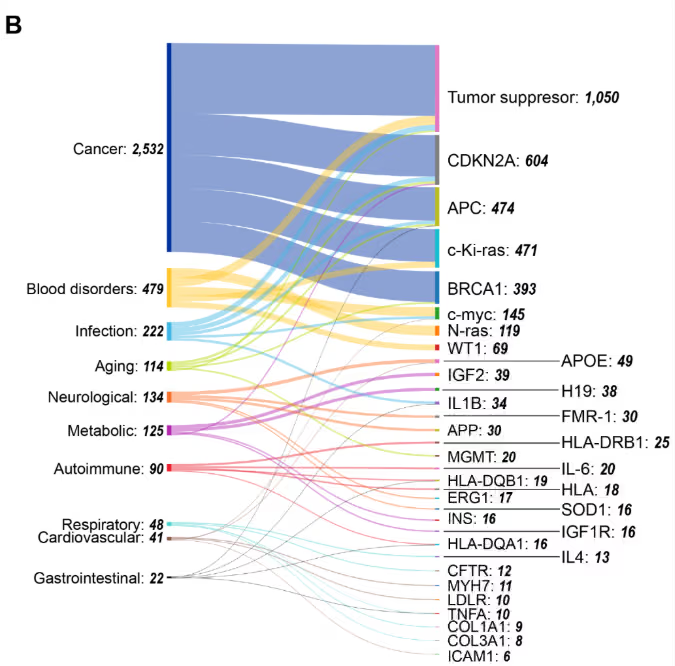

我们对基因与疾病共现关系的分析(图 5B)展示了癌症的核心地位,其中抑癌基因表现出最高的关联性。在多种癌症中具有高共现性的其他基因包括 CDKN2A,其次是 APC 和 c-Ki-ras (KRAS325)。这一模式反映了这些基因作为表观遗传枢纽,在多种恶性肿瘤中易受甲基化介导的沉默影响。
表观遗传时钟与衰老相关疾病
表观遗传时钟是一项突破性的概念,它利用计算模型根据 DNA 甲基化模式来预测生物学年龄。这些时钟能够揭示个体生物学年龄与实际年龄之间的差异,从而深入了解衰老过程以及生活方式和环境因素的影响。这些模型利用了 DNA 甲基化中可预测的年龄相关变化,即特定的基因组区域会以可重复的模式发生超甲基化或低甲基化。
第一代表观遗传时钟——Horvath 时钟,由 Steve Horvath 于 2013 年开发,它利用来自多种组织和细胞类型的 353 个 CpG 位点的 DNA 甲基化数据来估算生物学年龄。同年开发的 Hannum 时钟则主要利用血液中的 71 个 CpG 位点。更近期的时钟(如 GrimAge 和 PhenoAge)结合了额外的生物标志物(如血浆蛋白),以提高准确性并预测死亡率和疾病风险。
在长寿研究中,百岁老人和极长寿个体通常表现出较慢的表观遗传衰老速度,这为促进健康衰老的遗传和环境因素提供了线索。目前的研究正在探索通过衰老细胞裂解药物 (senolytics)和表观遗传调节剂靶向化合物实现逆转的可能性。
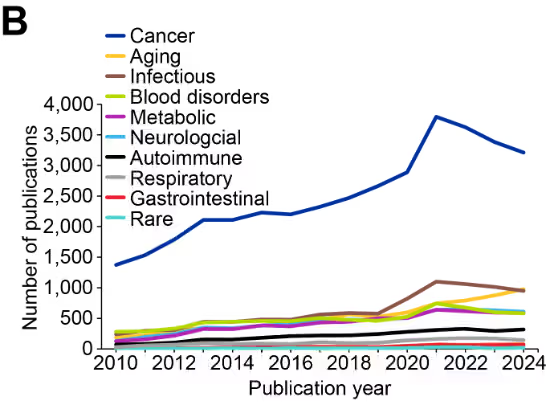
图 4A 中的研究文献趋势表明,明确提及疾病与衰老的表观遗传研究占 9%,虽然远低于癌症研究(47%),但从 2010 年到 2024 年呈现出持续增长态势,尤其在 2019 年之后增长显著(图 4B)。这一比例反映了衰老研究在以癌症应用为主导的更广泛表观遗传学领域中,正发挥着专业化且不断扩展的作用。
神经退行性疾病
表观遗传修饰已与阿尔茨海默病、帕金森病和肌萎缩侧索硬化症 (ALS) 等神经退行性疾病,以及抑郁症和精神分裂症等心理健康障碍联系在一起(图 6)。大量的研究成果反映了人们对神经精神和神经退行性病理中表观遗传机制的认识日益加深(见图 4A)。
表观遗传改变影响了阿尔茨海默病中涉及淀粉样蛋白-β (Aβ) 生成和 tau 蛋白磷酸化的基因,其中 miR-29352 和 miR-34354 等 miRNA 的失调与认知能力下降有关。帕金森病则表现出线粒体功能基因(如 PINK1355)和 α-突触核蛋白聚集通路中的表观遗传变化。在帕金森病模型中,组蛋白乙酰化和 DNA 甲基化模式的紊乱会影响神经元的存活。
自闭症谱系障碍表现为突触基因(如 SHANK3360)通过异常 DNA 甲基化和组蛋白修饰产生的失调,动物模型研究表明,产前接触丙戊酸等环境因素会诱导表观遗传改变。在癫痫中,表观遗传机制调节离子通道基因和突触可塑性基因,从而影响癫痫易感性,并伴有组蛋白修饰和 miRNA 失调。神经发育障碍是关键表观遗传调节的典型案例,例如编码甲基 CpG 结合蛋白的 MECP2 基因突变会导致雷特综合征,而 FMR1 高甲基化则会导致脆性 X 综合征。研究表明这些因素在动物模型中会诱导表观遗传改变。在癫痫中,表观遗传机制调节离子通道基因和突触可塑性基因,从而影响癫痫易感性,并伴有组蛋白修饰和 miRNA 失调。神经发育障碍是关键表观遗传调节的典型案例,例如编码甲基 CpG 结合蛋白的 MECP2 基因突变会导致雷特综合征,而 FMR1 高甲基化则会导致脆性 X 综合征。
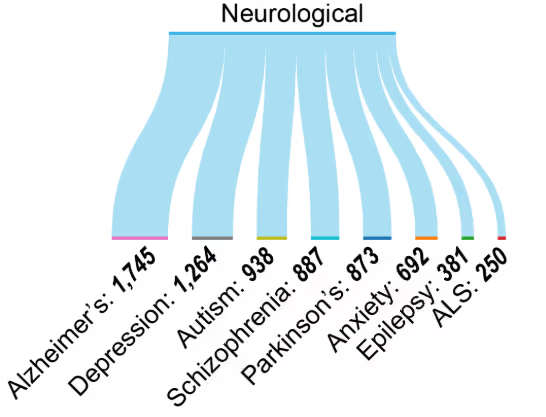
表观遗传改变作为神经系统疾病生物标志物的作用日益受到认可。BDNF372 和 COMT374 等基因的甲基化模式与认知功能及精神疾病相关,而特定的组蛋白标记(如 H3K27me3)则与神经退行性疾病中的基因调控网络有关。循环 miRNA,特别是 miR-132376 和 miR-124378,已显示出作为阿尔茨海默病和帕金森病无创诊断生物标志物的潜力,为早期检测和治疗监测提供了可能。
心血管疾病
表观遗传机制在多种心血管疾病的发病中发挥作用,尽管我们的出版数据分析显示,与癌症相比,该领域的研究关注度占比较小(见图 4A)。例如,在动脉粥样硬化中,DNA 甲基化和组蛋白修饰调节着参与炎症、脂质代谢和内皮功能的基因。促炎基因(如 IL-6384)的低甲基化和抗炎基因(如 PPARγ385)的高甲基化会促进斑块形成。
调节血管张力和钠稳态的基因发生表观遗传改变会导致高血压,而高盐饮食和压力等环境因素可诱导这些表观遗传改变。离子通道基因(如 SCN5A 和 KCNQ1392)的表观遗传调节可能使个体易患心律失常。同样,表观遗传修饰驱动病理性心脏重塑,包括肥大和纤维化。DNA 甲基化、组蛋白修饰和 miRNA 是这些过程的关键调节因子。在缺血性心脏病和中风中,DNA 甲基化和组蛋白修饰改变了控制细胞存活、应激反应和炎症通路的基因表达。
与神经系统疾病一样,这些改变作为生物标志物的记录也越来越多。F2RL3400 和 AHRR401 等基因的甲基化模式与心血管风险及预后相关。特定的组蛋白标记与心力衰竭和动脉粥样硬化中的基因调控网络有关。循环 miRNA 被用作急性心肌梗死和心力衰竭的生物标志物。
代谢性疾病
表观遗传修饰调节着代谢疾病中控制胰岛素敏感性、脂肪储存和炎症的基因。包括饮食和运动在内的环境因素会诱导持续的表观遗传改变,从而导致胰岛素抵抗和代谢功能障碍。
代谢性疾病在表观遗传学研究中占有相当大的比例(见图 4A),其中肥胖症和 2 型糖尿病研究在该领域占据主导地位。巨大的出版量反映了代谢性疾病的全球流行,以及人们对表观遗传学在代谢功能障碍中作用的认识不断加深。代谢表观遗传学研究的稳步但缓慢增长与神经系统和血液疾病相当(图 4B),但与癌症研究的指数级增长形成鲜明对比,这表明该领域仍有巨大的潜力有待挖掘。
研究发现,表观遗传学在以下方面发挥关键作用:
- 肥胖症:DNA 甲基化和组蛋白修饰调节脂肪生成、食欲控制和能量消耗基因,失调的 miRNA 与肥胖症及脂肪组织功能障碍有关。DNA 甲基化和组蛋白修饰调节脂肪生成、食欲控制和能量消耗基因,失调的 miRNA 与肥胖症及脂肪组织功能障碍有关。
- 2 型糖尿病(T2D):胰岛 β 细胞、肝脏和骨骼肌中的表观遗传改变影响胰岛素的产生和敏感性,包括 PPARGC1A 和 IRS1 基因的 DNA 甲基化。
- 非酒精性脂肪性肝病(NAFLD):DNA 甲基化和组蛋白修饰调节肝脏脂质代谢和炎症,miRNA 参与疾病进展。
- 代谢综合征:表观遗传改变影响葡萄糖代谢、脂质代谢和血压调节基因。
- 心脏代谢疾病:表观遗传机制通过包括 FTO418 和 ABCA1419 在内的基因 DNA 甲基化,将代谢失调与心血管并发症联系起来,这些基因与动脉粥样硬化和高血压风险相关。
代谢性疾病的表观遗传生物标志物包括与 T2D 和 NAFLD 相关的 TXNIP 和 SREBF1 基因的甲基化模式;与代谢基因调控网络相关的特定组蛋白标记;以及作为 T2D 和肥胖症生物标志物的循环 miRNA。这些生物标志物有助于代谢性疾病的早期检测、风险分层和治疗监测。
自身免疫性疾病
免疫耐受基因的异常甲基化可激活自身反应性 T 细胞,从而导致自身免疫性疾病。尽管具有重要的临床意义,但自身免疫性疾病在表观遗传学研究中仅占一小部分(见图 4A),与癌症研究的指数级增长相比,2010 年至 2024 年间的增长稳步但有限(图 4B)。这一研究差距表明,自身免疫表观遗传学的深入研究具有巨大潜力。
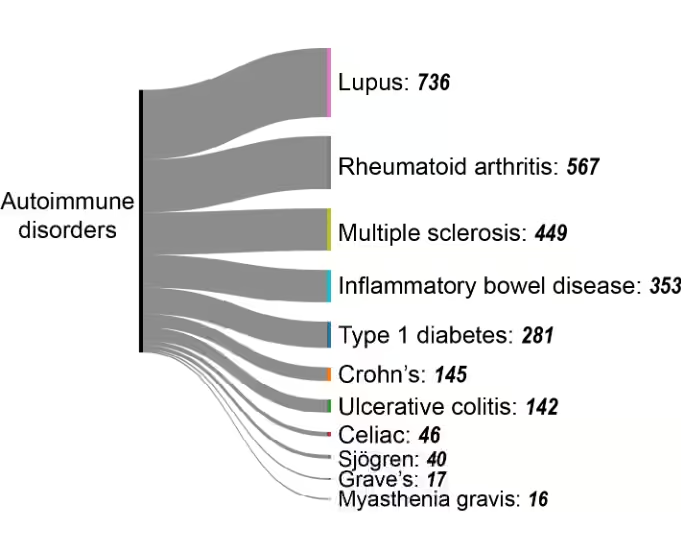
在自身免疫性疾病中,某些疾病已成为主要的研究领域(图 7):
- 系统性红斑狼疮(SLE)的发病机制与微小RNA(miRNA)的失调有关。
- 类风湿关节炎(RA)涉及滑膜成纤维细胞和免疫细胞中的DNA甲基化改变,从而促进关节炎症,同时组蛋白修饰调节促炎细胞因子的产生。
- 多发性硬化症(MS)表现为T细胞和B细胞中的表观遗传改变,影响免疫调节和髓鞘破坏基因,且miRNA失调与疾病进展相关。
- 1型糖尿病(T1D)涉及胰腺β细胞和免疫细胞中的DNA甲基化及组蛋白修饰,这些改变促成了胰岛素分泌细胞的自身免疫性破坏,其中miRNA(如miR-21、miR-34a)也参与了发病过程。
- 炎症性肠病(IBD),如克罗恩病和溃疡性结肠炎,表现为肠上皮细胞和免疫细胞中的表观遗传改变,这些改变在驱动慢性炎症的同时,也与miRNA失调有关。
表观遗传疗法:表观遗传药物的临床应用
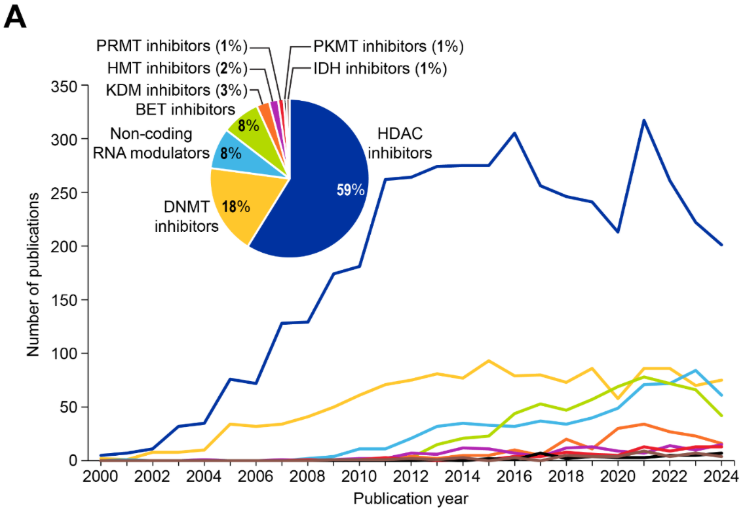
表观遗传药物(epi-drugs)通过逆转异常的表观遗传修饰,恢复疾病中失调基因的正常表达。治疗格局(见图8A)显示,HDAC抑制剂占据主导地位,占文献总数的59%,其次是DNMT抑制剂(18%)和RNA调节剂(非编码RNA调节剂各占8%)。
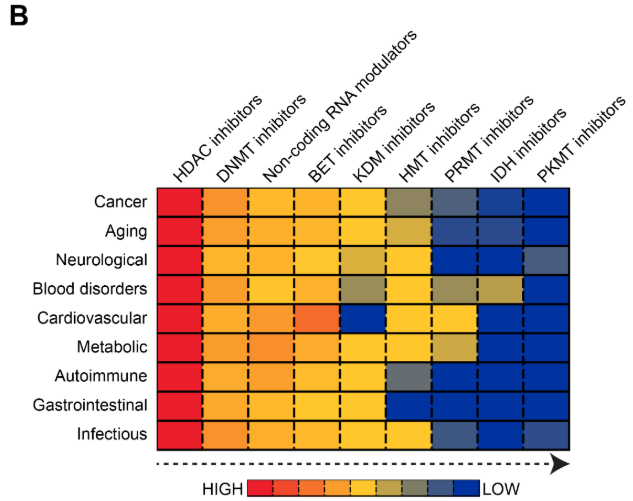
现有表观遗传药物:
- 组蛋白去乙酰化酶(HDAC)抑制剂 阻止组蛋白上乙酰基的去除,从而促进染色质结构的松弛并增加基因表达,包括肿瘤抑制基因的表达。HDAC抑制剂还作用于非组蛋白(如转录因子和伴侣蛋白),进一步增强其抗癌效果。
- DNA甲基转移酶(DNMT)抑制剂是相关研究文献中第二大药物类别。它们通过阻断DNMT,有助于重新激活癌症中被沉默的肿瘤抑制基因。目前获批临床使用的DNMT抑制剂包括阿扎胞苷(Vidaza®)和地西他滨(Dacogen®),它们属于核苷类似物,在复制过程中掺入DNA,不可逆地结合DNMT并阻止甲基化。
- 非编码RNA(ncRNA)调节剂通过靶向miRNA或lncRNA来影响基因调控。RNA调节剂似乎是一个快速增长的类别,特别是在2018年之后(图8A),这反映了人们已将miRNA和lncRNA视为精准医疗中可成药的靶点。
- 溴结构域和末端外结构域(BET)抑制剂阻断BET蛋白与乙酰化组蛋白的结合,从而破坏癌基因的转录激活。BET蛋白(如BRD2、BRD3、BRD4)参与识别并结合组蛋白上的乙酰化赖氨酸,充当表观遗传标记的“阅读器”。
- 组蛋白赖氨酸去甲基化酶(KDM)抑制剂阻断属于赖氨酸去甲基化酶(LSD)或含有Jumonji结构域(JmjC)家族的N-甲基赖氨酸去甲基化酶。目前尚无获批的KDM抑制剂,但一种KDM4抑制剂(zavondemstat)正处于临床试验阶段,相关研究也在持续开发更多此类药物。
- 组蛋白甲基转移酶(HMT)抑制剂靶向那些在组蛋白特定赖氨酸或精氨酸残基上添加甲基的酶,根据组蛋白类型和甲基化位置的不同,这些修饰可以激活或抑制基因表达。
- 蛋白精氨酸甲基转移酶(PRMT)抑制剂靶向蛋白甲基转移酶——即负责向蛋白质添加甲基并影响基因表达及细胞过程的酶。HMT抑制剂以及PRMT和PKMT抑制剂等蛋白甲基转移酶抑制剂仍处于早期开发阶段,而KDM抑制剂则展现出新兴的治疗潜力。
- 异柠檬酸脱氢酶(IDH)抑制剂靶向IDH酶的突变形式(如IDH1和IDH2),这些突变酶会产生致癌代谢物2-羟基戊二酸。这些酶通过在细胞内积累并抑制参与表观遗传调控的酶(如TET蛋白和组蛋白去甲基化酶),导致DNA高甲基化并阻断细胞分化。
- Zeste基因增强子同源物2(EZH2)抑制剂作为特异性HMT抑制剂发挥作用,通过降低H3K27me3水平并重新激活被沉默的肿瘤抑制基因,从而恢复正常的细胞分化并抑制肿瘤生长,特别是在具有EZH2突变或过表达的癌症中。
- 双重作用或多重表观遗传调节剂结合了针对多种表观遗传通路的机制。这些药物有望在复杂疾病中增强治疗效果。
共现分析
表观遗传疗法的临床前景已取得监管层面的成功,目前已有 13 种针对关键表观遗传调节因子的药物获得美国 FDA 批准(见图 9)。
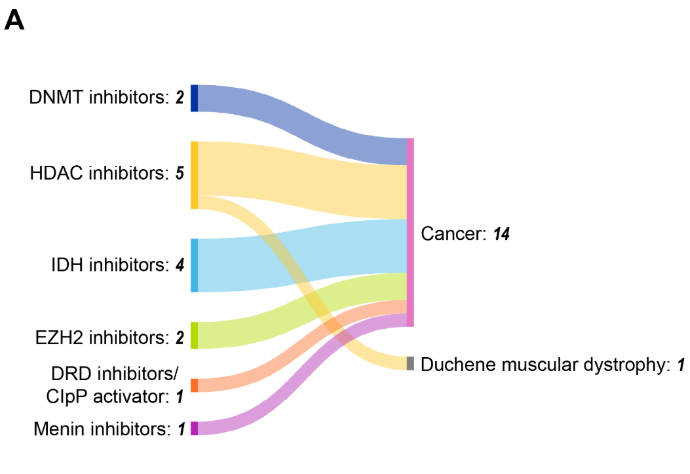
HDAC 抑制剂以 5 项获批记录领先,血液系统恶性肿瘤是其主要治疗应用领域,占 15 项获批适应症中的 12 项。这种集中度反映了血液肿瘤对表观遗传失调的敏感性,以及相较于实体瘤,血液学靶点更易于触达。
DNMT 抑制剂阿扎胞苷(2004 年)和地西他滨(2006 年)是最早获批的表观遗传药物,确立了针对骨髓增生异常综合征和急性髓系白血病(AML)进行 DNA 甲基化干预的概念验证。伏立诺他、罗米地辛和贝利司他等 HDAC 抑制剂已在多种血液系统恶性肿瘤中展现出疗效,验证了组蛋白修饰作为治疗靶点的有效性。
临床试验中的表观遗传药物
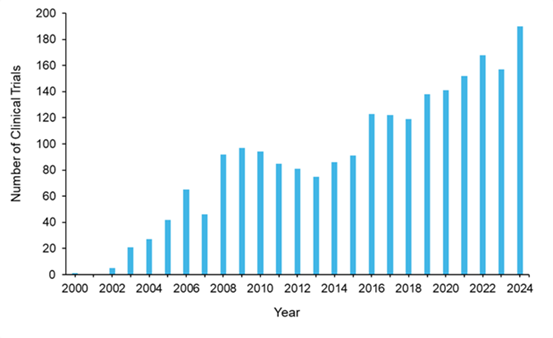
过去 25 年间,处于临床试验阶段的表观遗传药物领域发展迅速,在 clinicaltrials.gov 上注册的试验已近 2,200 项(见图 10)。从 2000 年的单项试验到 2024 年每年近 200 项临床试验,该领域保持了持续增长,期间的显著波动反映了监管里程碑和市场动态的影响。继阿扎胞苷于 2004 年获得美国 FDA 批准后,试验活动呈现出起伏波动但总体向上的趋势。这种增长模式表明,尽管存在周期性的整合阶段,制药行业的投资依然保持稳健。
对表观遗传治疗临床试验的阶段分布分析显示,II 期试验占比最高,达 57%,其次是 I 期(32%)和 III 期(9%)。这种分布符合药物研发的常规规律,反映了表观遗传药物研发的高流失率以及许多联合治疗策略的探索性特征。值得注意的是,62% 的试验涉及已获美国 FDA 批准的药物,这表明业界正致力于广泛的标签扩展和初始适应症之外的联合疗法探索。其余 38% 的临床试验针对的是较新的或尚未获批的创新药物。
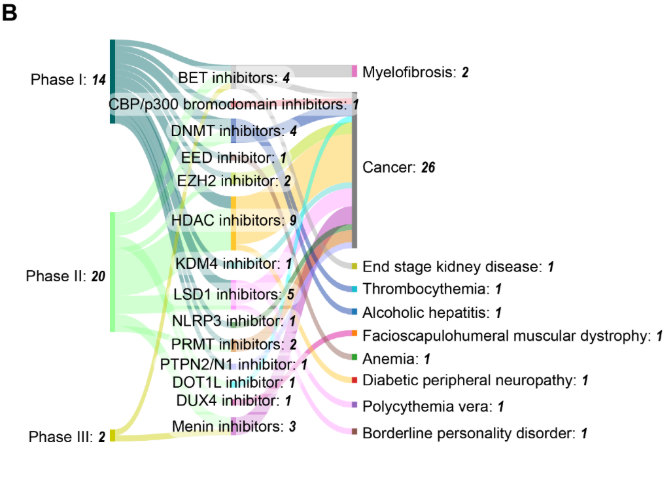
临床开发管线显示出活跃的态势,目前有 36 项试验正在进行中,涵盖三个阶段。II 期试验占据主导地位(23 项),DNMT 和 HDAC 抑制剂分别以 4 项和 11 项试验保持着强大的临床存在感。此外,研发领域已超越 DNMT 和 HDAC 抑制剂,LSD1、BET 和 menin 抑制剂正受到越来越多的探索(见图 9B)。这种分布既体现了对既定靶点的持续优化,也反映了向新型表观遗传调节因子的拓展。癌症治疗仍是主要应用领域,在 36 项试验中占据 26 项,但数据表明,该领域正令人鼓舞地向非肿瘤疾病多元化发展,包括血小板增多症、酒精性肝炎、骨髓纤维化和糖尿病周围神经病变等。
临床开发中极具前景的药物
在各类在研药物中,有几种药物在癌症及其他疾病治疗方面展现出广阔前景:
- 肿瘤学药物:
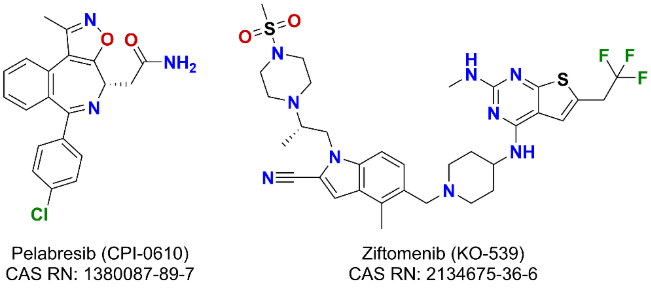
- Pelabresib (CPI-0610) 是一款先进的 BET 抑制剂,已进入治疗骨髓纤维化的 III 期临床试验。
- Ziftomenib (KO-539) 是一种针对 menin-KMT2A 蛋白-蛋白相互作用的选择性小分子抑制剂,于 2024 年 3 月获得美国 FDA 授予的突破性疗法认定,用于治疗复发性或难治性 NPM1 突变型急性髓系白血病(AML)。
- 非肿瘤学药物:
- Apabetalone (RVX-208) 是一种针对 BD2 结构域的选择性 BET 抑制剂,目前正处于治疗终末期肾病的 I/II 期临床试验阶段。
- Larsucosterol (DUR-928) 是一种内源性硫酸化氧甾醇,也是首创的表观遗传调节因子,目前正处于治疗酒精性肝炎的 II 期临床试验阶段。
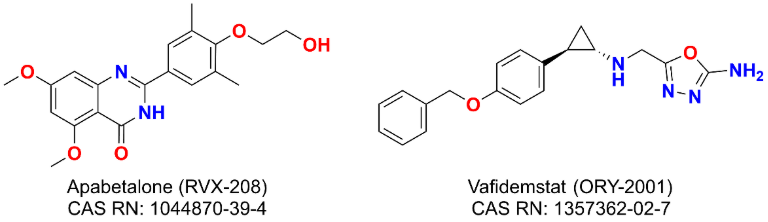
- Vafidemstat (ORY-2001) 是一种选择性 LSD1 抑制剂,目前正在进行治疗边缘型人格障碍的 II 期临床试验评估。
- 近期获批药物:
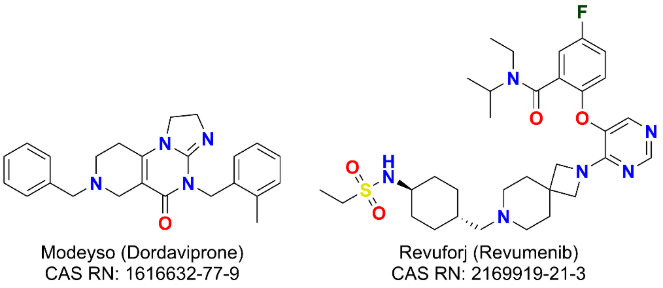
- Modeyso (Dordaviprone) 于 2025 年 8 月获得美国 FDA 加速批准,用于治疗一岁以上患者的 H3K27M 突变型弥漫性中线胶质瘤。
- Revuforj (Revumenib) 于 2024 年 11 月获得美国 FDA 批准,用于治疗成人及儿童复发性/难治性 KMT2A 重排急性髓系白血病 (AML)。
表观遗传学在个性化医疗中的应用
表观遗传数据的整合有助于开发高精度的诊断工具、预后标志物和治疗方案,尤其是在复杂疾病领域。如前所述,包括 DNMT 抑制剂和 HDAC 抑制剂在内的表观遗传药物已在临床上得到应用,并持续处于研发中。将表观遗传药物与化疗及免疫疗法相结合的联合疗法也在不断提高治疗效果,这代表了个性化治疗方案的一项关键进展。
表观遗传学的另一项重大突破是将这些修饰作为组织特异性生物标志物。此类疾病特异性模式的例子包括癌症中的抑癌基因高甲基化,以及阿尔茨海默病或帕金森病患者体内的异常甲基化和组蛋白修饰。
识别这些表观遗传生物标志物有助于实现疾病的早期检测与诊断。例如,通过液体活检检测血液或其他体液中癌症特异性的 DNA 甲基化模式,可实现非侵入性诊断与监测;通过母体血液中的表观遗传标志物进行产前检测,可评估胎儿健康状况。在预后方面,表观遗传标志物能够预测疾病转归及治疗反应。例如,甲基化状态可预测某些癌症的预后及转移可能性,而精神疾病中的表观遗传变化则可能预示药物反应。
表观遗传生物标志物的临床应用
表观遗传生物标志物对于疾病诊断、预后评估及治疗决策至关重要。我们分析了 CAS 内容合集中有关表观遗传生物标志物的文献,发现自 2008-2009 年左右起,相关文献数量急剧增加,期间经历了几个平台期(2015-2017 年和 2023-2024 年)(见图 11)。
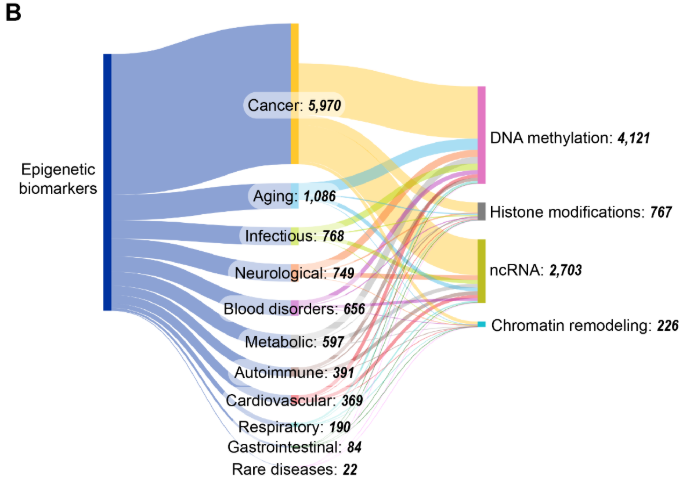
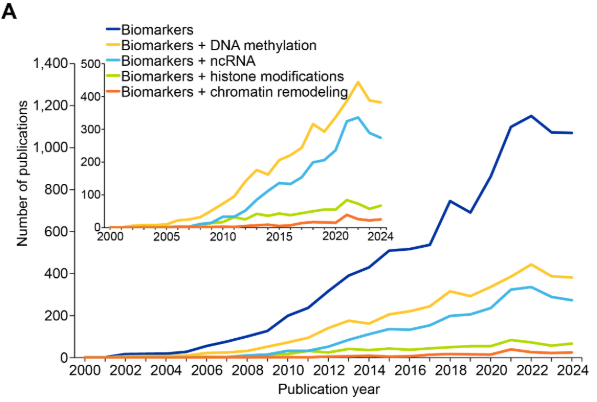
在四大主要表观遗传机制中,DNA 甲基化和非编码 RNA (ncRNA) 似乎研究最为深入,2015 年至 2022 年间,与 DNA 甲基化和 ncRNA 生物标志物相关的文献数量翻了一番,而组蛋白修饰和染色质重塑在此背景下相对研究较少。如图 11B 所示,癌症与表观遗传生物标志物相关文献的共现率最高,这反映了表观遗传失调在肿瘤发生中的既定作用,以及 MGMT516 和 VIM517 等甲基化标志物在诊断和预后中的临床价值。衰老研究的大量呈现,与近期表观遗传时钟的发展及其在生物年龄评估中的应用进展相一致。
DNA 甲基化生物标志物
异常的 DNA 甲基化模式是疾病的标志,尤其是抑癌基因的高甲基化,是多种癌症的常见生物标志物。例如,SEPT9 甲基化可通过血液检测实现结直肠癌的非侵入性筛查,作为结肠镜检查的替代方案。MGMT 甲基化可预测胶质母细胞瘤对替莫唑胺的反应,高甲基化通常与更好的预后相关。BRCA1 甲基化作为一种诊断和预后标志物,与乳腺癌和卵巢癌风险增加相关。值得注意的是,DNA 甲基化与表观遗传生物标志物研究的共现率最高,这很可能归因于其化学稳定性、成熟的检测方法以及通过 FDA 批准的检测手段实现的直接临床转化。
组蛋白修饰生物标志物
组蛋白修饰影响染色质结构和基因表达,特定的组蛋白标记与疾病状态相关。如图 11B 所示,组蛋白修饰的共现率相对较低,这表明其潜力尚未得到充分挖掘,特别是考虑到它们具有动态特性且对治疗干预具有响应性。
组蛋白 H4 乙酰化的缺失预示着某些癌症的预后不良,而组蛋白 H3 赖氨酸 27 三甲基化 (H3K27me3) 则反映了 PRC2 的失调,并与前列腺癌和膀胱癌的预后不良相关。组蛋白 H3/H4 瓜氨酸化与抗瓜氨酸化蛋白抗体 (ACPA) 的产生有关,这是类风湿性关节炎的标志,可用于疾病的诊断和监测。
尽管这些发现前景广阔,但仍存在挑战,例如组蛋白修饰的高度不稳定性,以及它们对酶促降解的敏感性,导致样本采集后几分钟内信号就会迅速丢失。目前的实验方案需要使用含有蛋白酶、脱乙酰酶和去甲基化酶抑制剂的专用保存缓冲液,这增加了临床常规实施的复杂性。
ncRNA 生物标志物
包括 miR-21529 和 miR-155530 在内的 ncRNA 在多种癌症中呈过表达状态,可通过体液作为诊断和预后生物标志物。ncRNA 与表观遗传生物标志物研究的大量共现,反映了人们对循环 miRNA 和 lncRNA 作为微创生物标志物的兴趣日益浓厚。
例如,miR-21 的过表达与乳腺癌、肺癌和结直肠癌的肿瘤生长、侵袭、转移及化疗耐药性相关。miR-208a 水平升高可作为急性心肌梗死(心脏病发作)的生物标志物。HOTAIR lncRNA 的过表达也与乳腺癌、结直肠癌和胰腺癌的转移及预后不良有关。
染色质重塑生物标志物
染色质重塑模式可预测治疗耐药性,耐药癌细胞中的开放染色质区域被用于预测治疗失败。与组蛋白修饰类似,染色质重塑的共现率相对较低,这表明其仍有巨大的潜力待挖掘。
总体而言,表观遗传生物标志物的未来在于开发稳健的高通量技术和整合方法。结合表观遗传学、基因组学、转录组学和蛋白质组学数据的多组学整合,将增强生物标志物的发现与验证。通过体液对表观遗传生物标志物进行无创检测,将彻底改变早期诊断和监测方式。
先进的计算工具预计将有助于识别复杂的表观遗传特征,从而实现患者分层。例如,基于 CRISPR 的表观基因组编辑技术可能实现对疾病相关表观遗传标记的调控,从而用于治疗目的,使生物标志物从诊断工具向治疗工具转化。
表观遗传学在医学应用中的伦理、法律和社会影响
表观遗传学有望改变我们对健康和疾病的认知,但同时也带来了重大的伦理、法律和社会挑战。应对这些挑战需要采取积极且协作的方法,在平衡表观遗传学研究带来的益处与保护个人权利、促进社会公正的需求之间找到平衡点。通过制定健全的伦理准则、法律保护措施和公众参与策略,我们能够在最大限度减少潜在危害的同时,利用表观遗传学的力量改善人类健康与福祉。
伦理考量
- 隐私与歧视:与基因数据一样,表观遗传信息具有高度的个人属性,能够揭示有关个人健康、生活方式选择和环境暴露的敏感信息,因此需要强有力的隐私保护。例如,预测疾病风险的表观遗传标记可能导致健康保险公司通过提高保费或拒绝承保来进行歧视。同样,通过过往行为检测表观遗传修饰的能力,也引发了人们对追溯性健康评估和就业歧视的担忧。
- 个人责任与跨代影响:相关地,表观遗传信息可能导致人们将健康状况归咎于个人,而忽视了更广泛的社会和环境健康决定因素。由环境因素诱导的表观遗传变化有时会遗传给后代。这引发了关于改变表观遗传标记的干预措施所带来的长期后果的伦理担忧。
法律要求
- 监管监督:直接面向消费者的表观遗传检测试剂盒的激增,引发了人们对准确性、解读和监管的担忧。法律框架必须确保这些应用基于科学证据且符合伦理,同时防止未经证实的技术过早商业化。
- 责任与知识产权:与环境暴露相关的表观遗传修饰引发了复杂的责任问题。例如,毒素引起的伤害应由雇主、制造商还是政府负责?因父母或第三方过失或环境暴露而对胎儿造成的表观遗传伤害,其潜在的法律责任需要仔细考量。表观遗传研究成果(如生物标志物或疗法)的商业化引发了专利和所有权问题,需要在创新与维持公众获取表观遗传技术之间取得平衡。
社会影响
- 公众认知与公平:公众对表观遗传学的了解有限,这使得误解和利用未经证实的疗法(如“表观遗传饮食”)的行为有机可乘。全面的教育和强有力的科学传播对于解决这一问题并改善知情决策至关重要。将环境暴露与疾病联系起来的表观遗传研究,也可能导致对某些社区或人群的污名化,特别是那些暴露于高水平污染或毒素环境中的群体。确保公平获取表观遗传疗法并防止健康差距扩大,需要采取审慎的政策干预措施来解决社会经济障碍。
- 实施策略:有效的治理需要:针对表观遗传数据的收集、使用和共享制定明确的伦理准则;更新法律框架以应对表观遗传信息带来的独特挑战;通过公众参与建立信任并实现知情同意;以及通过国际合作确保各司法管辖区标准的一致性。通过在促进负责任创新的同时建立强有力的保护机制,社会可以利用表观遗传学的变革潜力,同时保障个人权利并促进健康公平。
表观遗传学的未来方向
过去十年,表观遗传学研究领域发生了显著变革,已从分子生物学的一个专门分支演变为主流生物医学学科,对人类健康和治疗干预具有深远影响。表观遗传研究的临床转化已取得显著成就,15 种获 FDA 批准的药物验证了表观遗传靶点在治疗上的可行性。目前跨多个开发阶段的 36 项临床试验表明,人们对表观遗传疗法的投资和信心持续增长,且应用范围已超越肿瘤学,扩展至代谢、神经、炎症和罕见病领域。
这一转变反映出人们日益认识到,饮食、压力、毒素和生活方式选择等环境因素会诱导产生具有跨代影响的可遗传表观遗传变化。将环境暴露数据与个人表观遗传图谱相结合,能够实现个性化的风险评估和干预策略,这代表了向预防性精准医疗模式的根本性转变。
表观遗传学的未来前景广阔,在推动生物学认知和改善人类健康方面具有巨大潜力。然而,要实现这一潜力,需要克服技术局限、伦理担忧以及表观遗传调控复杂性等重大挑战。通过促进跨学科合作、投资创新技术并解决伦理和社会影响,表观遗传学领域将能够继续取得突破性发现,并将其转化为具有实际意义的临床和社会效益。
如需了解更多关于表观遗传学领域的信息,请参阅我们的同行评审期刊文章。